Cuaderno de Lab

Plant Journal

Notas del laboratorio: lo que las plantas miden, hacen y muestran — con fuentes. Cada texto está escrito sin técnica, solo el relato del laboratorio.

[ 01 ]

El bosque como red — y por qué no es una computadora cuántica

Imaginemos: los filamentos fúngicos bajo el bosque son un sistema nervioso. ¿Quién o qué es entonces un roble? ¿Un helecho? ¿Una mata de hierba?

Primero, la parte sincera: esa metáfora es demasiado forzada. Lo que está demostrado es que las micorrizas conectan raíces y transportan sustancias — las plantas que no realizan la fotosíntesis por sí mismas, como las especies micoheterótrofas, incluso viven enteramente de ellas. Lo que *no* está demostrado: que tales redes existan por todas partes en los bosques, que los árboles se alimenten y se adviertan mutuamente a través de ellas, y que reconozcan a sus parientes. De los 28 estudios de campo con bloqueo de red, cinco hallaron un efecto positivo en las plántulas — y la misma cantidad, un efecto negativo. El "sistema nervioso" es, por tanto, más bien una red compartida de nutrientes y señales que un cerebro.

En esa red, las plantas no son pasajeras, sino tres cosas al mismo tiempo:

  • la central de energía: la red funciona con azúcares procedentes de la fotosíntesis; sin cubierta vegetal no hay corriente;
  • el sensor: cada planta mide a nivel local la luz, el agua y los daños y los envía a la red;
  • el punto final: lo que el hongo extrae del suelo —fósforo, nitrógeno— regresa a la planta.

El roble es en esto la columna vertebral de larga vida: el mismo nodo durante décadas o siglos, con una gran reserva. El helecho es el forastero: un linaje vegetal antiguo que a menudo forma micorrizas nulas o débiles — un nodo que apenas participa. Las gramíneas son el borde de malla fina: hongos arbusculares, densos sistemas radiculares, corta vida útil — mucho ancho de banda, reemplazo rápido.

¿Y la computadora cuántica? Hay una profunda similitud: ambas computan en el material mismo. El moho mucilaginoso que converge hacia el camino más corto es un proceso de cálculo analógico; una computadora cuántica hace interferir amplitudes para que los caminos erróneos se cancelen entre sí. En ambos casos, se deja que la física encuentre la respuesta. Pero las diferencias son grandes: el bosque no conoce la superposición ni el entrelazamiento como medio de cálculo — las señales entre los árboles son correlaciones clásicas, no entrelazamiento. Los efectos cuánticos *sí* existen en el bosque (en la fotosíntesis), pero eso es biología cuántica, no computación cuántica.

Por lo tanto, el bosque no es una computadora cuántica. Es una computadora analógica sin programador — y el moho mucilaginoso es la prueba de que tales computadoras existen.


Fuente(s): Karst et al. - 'Positive citation bias and overinterpreted results ... mycorrhizal networks' (Nature Ecology & Evolution, 2023, https://doi.org/10.1038/s41559-023-01986-1); Merckx et al. - 'Mycoheterotrophy in the wood-wide web' (Nature Plants, 2024, https://doi.org/10.1038/s41477-024-01677-0); Engel et al. - 'Evidence for wavelike energy transfer through quantum coherence in photosynthetic systems' (Nature, 2007, https://doi.org/10.1038/nature05678); Adamatzky - 'Physarum Machines' (World Scientific, 2010)

[ 02 ]

El moho mucilaginoso amarillo: el camino más corto a través de los copos de avena

Coloca dos copos de avena en una placa de Petri con agar, pon un trozo de moho mucilaginoso amarillo entre ellos... y espera. En un plazo de veinticuatro horas, el organismo se habrá extendido sobre todo lo que hay entre los copos; tras un par de días, casi todo se habrá retraído de nuevo, excepto un tubo grueso: la ruta más corta entre los dos copos. Este es el experimento más famoso con Physarum polycephalum, un organismo unicelular que puede llegar a medir hasta un metro cuadrado; no es un hongo, a pesar del nombre común, sino un protista ameboide con miles de núcleos en una sola masa celular.

Cómo funciona: el moho explora ampliamente, y en cada tubo el flujo determina el destino. Por donde pasa un gran flujo de nutrientes, el tubo se engrosa; por donde fluye poco, se marchita. Ese único principio —más flujo, tubo más grueso— es suficiente para conservar finalmente el camino más corto. Los matemáticos han demostrado que este mecanismo siempre converge hacia la ruta más corta, independientemente de la red o de la distribución inicial.

Aún más conocido que el laberinto es el mapa de Tokio: con copos de avena en el lugar de las ciudades, el moho mucilaginoso construyó una red que se parece sorprendentemente a la red ferroviaria japonesa, con una eficiencia comparable e incluso un toque más de robustez. En un mapa tridimensional de Los Ángeles hizo lo mismo: su red resultó ser, en proporción, más de 65 km más corta que la red de carreteras creada por los humanos.

¿Y qué es lo que más le gusta comer? Azúcares, pero ni mucho menos todos. En los experimentos clásicos de quimiotaxis (1970-1978), el moho se sintió atraído con mayor fuerza por la glucosa (incluso a 0,25 mM), seguida de la maltosa, galactosa y manosa; la lactosa y la N-acetil-glucosamina también lo atraen. No reaccionó a la sacarosa, fructosa y ribosa, a pesar de que sí puede digerir la fructosa. Por lo tanto, percibir y comer son dos sistemas distintos: la 2-desoxiglucosa incluso lo atrae a pesar de no tener valor nutricional. Y el amor tiene un límite: alrededor de los 100 mM, la atracción se transforma en repulsión (ósmosis).

¿Por qué precisamente copos de avena? Un copo de avena es aproximadamente un 70% de carbohidratos: almidón que se descompone gradualmente precisamente en esa glucosa y maltosa hacia las que el moho muestra mayor atracción, además de proteínas, grasas y minerales para el crecimiento. Además, puede oler el copo desde la distancia: los azúcares se difunden a través del agar. No es de extrañar que la avena haya sido durante años el alimento estándar en cualquier laboratorio de mohos mucilaginosos.

Lo que nos enseña: una red que encuentra los caminos más cortos no necesita cerebro, solo una regla y paciencia. Al igual que con las plantas de nuestra instalación: la respuesta reside en el sistema, no en un centro.

Cómo hacer la prueba tú mismo: agar al 2% en una placa de Petri, copos de avena en puntos fijos, ambiente oscuro y húmedo a 25 °C, una foto cada pocas horas y, tras 48–72 horas, medir las rutas (por ejemplo, en ImageJ).


Fuente(s): Nakagaki, Yamada & Toth - 'Maze-solving by an amoeboid organism' (Nature, 2000, https://doi.org/10.1038/35035159); Tero et al. - 'Rules for Biologically Inspired Adaptive Network Design' (Science, 2010, https://doi.org/10.1126/science.1177894); Bonifaci, Mehlhorn & Varma - 'Physarum can compute shortest paths' (2012, https://arxiv.org/abs/1106.0423); 'Investigating Los Angeles' urban roadway network' (2020, https://pmc.ncbi.nlm.nih.gov/articles/PMC6964692); Knowles & Carlile - 'Chemotactic response ... to sugars' (1978, https://doi.org/10.1099/00221287-108-1-17); Carlile - 'Nutrition and chemotaxis' (1970, https://doi.org/10.1099/00221287-63-2-221); Whiting & de Lacy Costello - 'Sensory fusion in Physarum' (2014, https://arxiv.org/abs/1403.4795)

[ 03 ]

¿Cuánto voltaje genera una planta? ¿Y qué hacen 35 grados?

Primero, aclaremos un malentendido: una planta no "produce" voltaje por día. El voltaje es un estado instantáneo; lo que sí es medible son las señales: picos y ondas lentas que siguen a los acontecimientos.

Los órdenes de magnitud:

  • En la célula (potencial de membrana): potencial de reposo de decenas de milivoltios (negativo en el interior); potenciales de acción de unas pocas decenas hasta más de 100 mV. Ejemplos clásicos: soja ~60 mV con luz, patata 40 ± 10 mV por herbivoría, venus atrapamoscas más de 100 mV.
  • En la superficie (nuestra configuración: electrodos en la hoja o el tallo, referencia en el suelo): mucho menor. Respuestas de estrés medidas: ~7–10 mV (arabidopsis, yuca), con picos de hasta decenas de milivoltios por heridas; los eventos débiles o lentos se sitúan en el rango sub-mV. Y las señales de las plantas son lentas: prácticamente todo por debajo de 0,2 Hz.

Y luego, el día de 35 grados. El calor es un estímulo: un calentamiento moderado hiperpolariza la membrana, pero por encima del punto óptimo (para muchas plantas alrededor de los 30 °C) se transforma en despolarización: auténticas señales. Un choque térmico desencadena en la arabidopsis un único potencial de acción. Por lo tanto, en un día caluroso cabe esperar más señales (calor más deshidratación), no necesariamente voltajes más altos: sigue siendo un par de milivoltios en la superficie.

Dos advertencias para la medición en sí en un día así: los electrodos de Ag/AgCl son sensibles a la temperatura (tensiones térmicas y deriva), y la planta transpira más mientras el suelo se seca; precisamente por eso los laboratorios mantienen la temperatura constante y miden en una jaula de Faraday. A 35 grados se mide, por tanto, más planta y también más artefacto; la diferencia radica en el patrón: ondas lentas vinculadas al estímulo frente a deriva y zumbido.


Fuente(s): Volkov - 'Plants as Environmental Biosensors' (2012, https://pmc.ncbi.nlm.nih.gov/articles/PMC2635006); 'Evaluating Bacterial Nanocellulose Interfaces for Recording Surface Biopotentials from Plants' (2024, https://pmc.ncbi.nlm.nih.gov/articles/PMC11014089); Sukhov et al. - 'Electrical Signaling of Plants under Abiotic Stressors' (2021, https://pmc.ncbi.nlm.nih.gov/articles/PMC8509212); Fromm & Lautner - 'Electrical signals and their physiological significance in plants' (2007, https://onlinelibrary.wiley.com/doi/full/10.1111/j.1365-3040.2006.01614.x)

[ 04 ]

¿Puede sonar una planta? De la luz al sonido

Las plantas convierten la luz en energía: azúcares. ¿Puede salir sonido de ahí? Hay tres vías, de lo literal a lo poético.

1\. Cosechar la energía. En el suelo alrededor de las raíces viven bacterias que liberan electrones. Con dos electrodos se puede convertir una maceta en una pila de combustible: una pila de combustible microbiana vegetal. Funciona: empresas como Plant-e llevan años construyendo instalaciones con ella. Pero el rendimiento es pequeño, milivatios por metro cuadrado: suficiente para una diminuta señal acústica o una lucecita, no para un altavoz. Por tanto, la planta puede alimentar su propia voz, pero en voz baja.

2\. Hacer audibles las señales. Este es el mismo camino que nuestra instalación de luz: electrodos en la hoja o el tallo miden las fluctuaciones de voltaje. Donde nosotros las traducimos a luz, también se pueden traducir a tonos; dispositivos como Music of the Plants (desde los años setenta, Damanhur) y PlantWave llevan décadas haciéndolo. Una sola base de código puede controlar tanto la luz como el sonido: la misma señal, dos sentidos.

3\. La planta ya emite sonido. La respuesta más contundente: las plantas emiten clics ultrasónicos (20–100 kHz), especialmente bajo estrés. En condiciones de sequía, los investigadores midieron 35 clics por hora en tomateras y 11 en plantas de tabaco; las plantas sanas se mantuvieron por debajo de uno por hora. Esos clics se pueden medir a metros de distancia y revelan el estado de la planta; probablemente se producen cuando estallan burbujas de aire en los haces vasculares. Ralentizado al rango audible, una planta suena como una suave lluvia de golpecitos.

Para nuestra instalación, esto significa: el sonido puede añadirse, no como una traducción de "lo que dice la planta", sino como un sentido adicional sobre las mismas señales y mediciones.


Fuente(s): Khait et al. - 'Sounds emitted by plants under stress are airborne and informative' (Cell, 2023, https://doi.org/10.1016/j.cell.2023.03.009); Plant-e - elektriciteit uit levende planten ( https://www.plant-e.com); Music of the Plants (Damanhur, https://www.musicoftheplants.com); PlantWave ( https://plantwave.com)

[ 05 ]

La luz como estímulo: por qué el ciclo de luz guía las mediciones

Las plantas no ven la luz, pero sí la miden. Los fotorreceptores de las hojas registran cuánta luz y qué tipo de luz hay, y con ello dirigen el reloj diurno y nocturno de la planta: cuándo se abren los estomas, cuándo se producen y distribuyen los azúcares, cuándo se alargan las células.

Ese ritmo es tanto el ruido como la señal en cada experimento electrofisiológico. Si enciendes la luz, en cuestión de segundos cambia el voltaje a través de la membrana celular en numerosos lugares —una respuesta natural que puedes utilizar como estímulo, siempre que la separes del resto. Por eso los laboratorios trabajan con protocolos de luz fijos: periodos con luz encendida y apagada, patrones fijos y periodos de control en los que nada cambia. De este modo, se sabe qué cambio fue causado por la luz y cuál generó la propia planta.

La luz también puede provenir de la propia planta: la bioluminiscencia, como el tenue brillo de las luciérnagas en el crepúsculo, es el fenómeno inverso —luz biológica que comunica algo a otros organismos. En la instalación, de vez en cuando aparece una luz tan sutil entre las plantas.

Para las mediciones, esto implica una sola regla: el ciclo de luz es una variable de medición, no un decorado.

[ 06 ]

Señales bajo tierra: la red viva en la maceta

Bajo la maceta, entre las raíces, hay un mundo que fluye de forma medible. Los suelos están llenos de vida microbiana, y una parte de esa vida es electroquímicamente activa: microorganismos que intercambian electrones con su entorno. Los investigadores utilizan esa actividad como indicador de la salud del suelo — las señales eléctricas entre la planta y la vida del suelo revelan qué necesita el sistema.

Además, existe la red que conecta literalmente el suelo: hongos que, a través de micorrizas, unen las raíces de distintas plantas entre sí. Transportan nutrientes — y, según un número creciente de estudios, también información: una advertencia o señal de estrés puede viajar a través de la red fúngica de una planta a otra. Cuán importante es exactamente ese papel sigue siendo objeto de intensa investigación; los hallazgos son prometedores pero aún no concluyentes.

Para nuestra instalación, esa es la tercera capa: las plantas del vestíbulo están en tierra para macetas, y esa tierra no es un sustrato inerte sino una red viva. Lo que ocurre en la maceta es, quizás, el sistema de comunicación más antiguo de la sala.

Esa capa resulta especialmente interesante para la monitorización: las señales del suelo se pueden medir sin necesidad de tocar la planta en sí — exactamente lo que se necesita para colecciones vulnerables.


Fuente(s): Washington State University - 'Engineers, plant scientists decode electrochemical soil signals' (2026, https://research.wsu.edu/news/engineers-plant-scientists-decode-electrochemical-soil-signals); arXiv 2509.08434 (preprint) - 'Information and Communication Theoretical Foundations of the Internet of Plants' ( https://arxiv.org/abs/2509.08434)

[ 07 ]

Dónde comienza una señal: sensores rastrean señales vegetales a lo largo de toda la planta

¿Dónde comienza una señal cuando tocas una hoja? Quien mide eléctricamente las plantas conoce la limitación: con uno o dos puntos de medición sabes que algo está sucediendo, pero no dónde comenzó ni hacia dónde se dirige. Investigadores en Singapur y en A\*STAR cambiaron eso: con una matriz de sensores suave y flexible a lo largo del peciolo de la Mimosa pudica —la planta que pliega sus hojas al contacto—, siguieron la señal a lo largo de toda su longitud.

A partir de las mediciones se crearon mapas en el tiempo y el espacio: se ve la señal originarse, propagarse hacia la base del peciolo, y solo allí se pliega la hoja. Ante el contacto, el frío y el calor observaron el mismo patrón: primero medir y señalizar, solo después moverse; el movimiento en sí se produjo en menos de medio segundo. El mismo enfoque funcionó también en otras plantas, como la arabidopsis y el pak choi.

Ese detalle es más que una simple curiosidad. Demuestra que un evento en una hoja viaja eléctricamente a través de la planta antes de que se produzca la reacción visible. Para quienes desean medir señales de las plantas —también en nuestra instalación—, esa es la clave: la señal llega antes que la respuesta.

Las fuentes se encuentran al final de este artículo: el comunicado de prensa de NTU Singapore y el artículo científico en Nature Electronics.


Bron(nen): NTU Singapore - 'Soft electrode array maps electrical signals travelling through plants' (15 sep 2026, https://www.ntu.edu.sg/mse/news-events/news/detail/soft-electrode-array-maps-electrical-signals-travelling-through-plants); wetenschappelijk artikel in Nature Electronics (mei 2026)

[ 08 ]

El lenguaje de los olores: qué huelen las plantas — y cómo

Una planta que sufre daños no emite sonido, sino una mezcla: compuestos orgánicos volátiles — COV. Pequeñas moléculas que se evaporan de hojas, tallos y flores, y que ponen en alerta las defensas de las plantas vecinas. Que los olores transmiten información era algo conocido. Cómo los percibe exactamente una planta sigue siendo en gran parte un misterio — y justo sobre esto aparecieron nuevas revisiones en 2026.

Lo que lo hace especial: las plantas no reconocen algunos olores directamente, sino a través de un rodeo. Ciertos receptores parecen convertir primero la molécula volátil en una forma más activa. El salicilato de metilo, por ejemplo, se transforma en la hoja en ácido salicílico — una molécula de señal clásica — y solo entonces se activa la defensa. Y el mensaje no reside en una sola sustancia: la proporción de la mezcla determina qué mensaje se transmite. Omitir un solo componente de una mezcla ya puede hacer que el mensaje sea ilegible.

Un nuevo estudio siguió esa conversación sin tocar las plantas: mediante registros de series temporales, las receptoras reaccionaron a los olores de plantas dañadas, incluso cuando faltaban los 'olores a hoja verde' más conocidos. Las plantas dañadas emitieron de media unos 22 compuestos; las sanas, alrededor de 10.

Para nuestra instalación, donde el aspecto eléctrico ocupa el lugar central, este es el segundo gran lenguaje: el olor viaja por el aire, la señal viaja por la planta. Quien sigue ambos, sigue una conversación en dos canales.


Fuente(s): The Plant Journal - 'Molecular insights into volatile organic compound sensing and signaling in plants' (14 mar 2026, https://pmc.ncbi.nlm.nih.gov/articles/PMC12988820); Frontiers in Plant Science - 'Revisiting volatile organic compounds' role in plant communication' (2026, https://www.frontiersin.org/journals/plant-science/articles/10.3389/fpls.2026.1829872/full)

[ 09 ]

Raíces o arena: ¿quién conduce la señal en la maceta?

Coloca dos plantas en una misma maceta y envía una pequeña señal de voltaje a través de una de ellas: ¿quién la transporta hasta la otra, las raíces o el sustrato? La respuesta es aleccionadora: el sustrato. No la arena en sí (la arena seca no conduce nada, es vidrio), sino el agua contenida en ella con sus iones disueltos. El sustrato húmedo es un electrolito; todo el volumen entre las dos plantas participa. Las raíces constituyen una vía paralela mucho más fina y de alta impedancia: una contribución mínima.

Por eso precisamente la «comunicación» entre plantas en una maceta compartida resulta tan sospechosa. Si mides una señal en la segunda planta, lo más probable es que estés midiendo la distribución de voltaje en la tierra húmeda, no un mensaje de la planta. Los investigadores que trabajan con electrodos en el suelo conocen bien el problema: al mapear raíces, la corriente de inyección se fuga a través del sustrato y altera la medición. Y dispositivos como PhytlSigns incluso miden las señales de las plantas tomando el sustrato como referencia; por lo tanto, el suelo siempre forma parte del circuito.

Cómo comprobarlo tú mismo (cuatro pruebas, en este orden):

1. Sin plantas: inyecta la señal entre las dos posiciones de las plantas en la misma maceta. ¿La recibes? Entonces es el sustrato. 2. Seco frente a húmedo: repite con sustrato seco y húmedo; ¿la señal escala con la humedad? Entonces es la película de agua. 3. Conexión a tierra intermedia: coloca una placa metálica conectada a tierra entre las dos plantas. ¿Desaparece la señal? Entonces venía a través del sustrato. 4. Dos macetas: la configuración de referencia. Lo que quede una vez separado el sustrato es lo que realmente circula a través de las plantas.

Conclusión para nuestro montaje: en una maceta compartida con sustrato húmedo, la tierra es el mejor conductor y, por tanto, la mayor fuente de correlaciones espurias. Si quieres saber qué hacen las plantas por sí mismas, hay que silenciar el sustrato (separar, conectar a tierra o monitorizar activamente), exactamente como ya prescribe el estudio de viabilidad.

¿Y es la toma de tierra la solución?

Depende de a qué te refieras. Una referencia de medición —un punto cero bien definido, por ejemplo un electrodo en la tierra de esa planta concreta— es útil y estándar: PhytlSigns mide la planta frente al sustrato y presta atención explícita a la conexión a tierra de todo el instrumento. Pero la toma de tierra de protección (el enchufe de pared, el chasis metálico, la tubería de agua) es justo lo contrario de lo adecuado: genera bucles de masa, introduce zumbidos y conecta tus canales a través de una segunda vía. La regla es: la pantalla puede ir a tierra, la señal permanece flotante —alimentación por batería, amplificadores aislados, cables apantallados cortos.

Y en una maceta compartida, la toma de tierra no resuelve la diafonía: el sustrato lo conecta todo de todos modos, y un electrodo de tierra adicional no es más que otro nodo en la misma sopa; incluso proporciona a la corriente de inyección una ruta de retorno fácil. Lo que sí funciona, en orden de preferencia: separar (dos macetas), una placa conectada a tierra entre las plantas, monitorización activa y medición diferencial por canal con amplificadores aislados, de modo que el sustrato se convierta en modo común y el amplificador lo filtre.

¿Y un baño de agua compartido?

Coloca dos plantas juntas en agua con algo de arena y envía la señal a través de las hojas: obtendrás el cortocircuito al que te refieres, en un sentido práctico. El agua con iones presenta una resistencia de cientos de ohmios entre las zonas radiculares, mientras que la vía de la planta de la hoja a la raíz se sitúa en el rango de los kilo a megaohmios. Por lo tanto, la corriente opta masivamente por el agua: ambos sistemas radiculares se convierten en un único nodo eléctrico, y lo que mides en la otra hoja es el campo de voltaje del baño, no de la planta. No hay peligro con microvoltios: no se trata de un cortocircuito que cause fuego, simplemente es una medición que ya no dice nada sobre las plantas. (Solo con corrientes mayores entran en juego la electrólisis, la polarización y el daño radicular).

Lo que sí se puede hacer: un depósito de agua propio para cada planta (separados), o bien —si es necesario un único baño— mantener hojas y electrodos secos por encima del agua, medir de forma diferencial en cada planta frente a su propia referencia, aislar galvánicamente los canales y, si es necesario, monitorizar activamente el baño. Y la misma prueba de siempre: realiza la medición primero sin plantas. ¿Mides el baño? Entonces estás midiendo el baño.

¿Cómo reconocer el cortocircuito en el espectro?

El agua en sí conduce todas las frecuencias —desde corriente continua hasta megahercios—, por lo que el cortocircuito no es selectivo en frecuencia. Pero ese es precisamente el punto distintivo: la planta sí es selectiva. El tejido vegetal, con sus membranas, se comporta como un filtro de paso bajo (las verdaderas señales vegetales son lentas, por debajo de 0,2 Hz), mientras que a través del agua se cuela también todo el ruido rápido: el zumbido de 50 Hz y sus armónicos, y cualquier tono de prueba que inyectes.

Por tanto: recibir muchos hercios (decenas a miles) = sospechoso (agua, cables, red eléctrica). Pocos hercios, lentos (por debajo de 1 Hz) = posiblemente la planta. Y dado que los propios electrodos presentan una alta impedancia por debajo de ~1 Hz (doble capa), la vía del agua funciona mejor precisamente entre cientos de hercios y unos pocos kilohercios, justo donde la planta ya no deja pasar nada.

La prueba: realiza un barrido sinusoidal de 0,1 Hz a 1 kHz y observa la amplitud y la fase. Transmisión plana o creciente a altas frecuencias → el agua. Un comportamiento de paso bajo con una inflexión en las frecuencias bajas de hercios → el tejido.


Fuente(s): 'Non-Invasive Phenotyping of Sugar Beet and Maize Roots Using Field-Scale Spectral Electrical Impedance Tomography' (2025, https://pmc.ncbi.nlm.nih.gov/articles/PMC12415421); 'Electrophysiological assessment of plant status outside a Faraday cage' (2019, https://pmc.ncbi.nlm.nih.gov/articles/PMC6864072); Principios básicos de ERT (SOIL, 2025, https://soil.copernicus.org/articles/11/67); 'Plant electrical signals: A multidisciplinary challenge' (2021, https://www.sciencedirect.com/science/article/pii/S0176161721000572)
Diario

Actualizaciones, observaciones y desarrollos de la instalación Plantstallation.

15 de octubre de 2026Desarrollo

Nodos V2 instalados

Los seis nodos autónomos han sido instalados en la instalación. Cada nodo mide el bio-potencial de las plantas. Las primeras mediciones muestran señales estables de las plantas.

10 de octubre de 2026Observación

Primer bio-spike detectado

El nodo-03 detectó un bio-spike fuerte de 412mV en la hoja #7. Esta es la primera medición significativa desde la instalación de los nuevos sensores. El pico correlaciona con un visitante cerca de la planta.

5 de octubre de 2026Técnico

Parche TouchDesigner actualizado

El parche TouchDesigner 'breath' ha sido actualizado con nuevos parámetros para la proyección de luz. La intensidad ahora responde en tiempo real a las señales bio de las plantas. La intensidad promedio es de alrededor de 0,74.

1 de octubre de 2026Exposición

Preparación exposición Wijngaard 16

La instalación se está preparando para la exposición en Wijngaard 16. Todos los componentes han sido probados y la configuración de iluminación ha sido optimizada para el espacio. Las plantas han sido movidas a sus posiciones finales.

Módulo de monitoreo en tiempo real
NODE-03 · LIVE
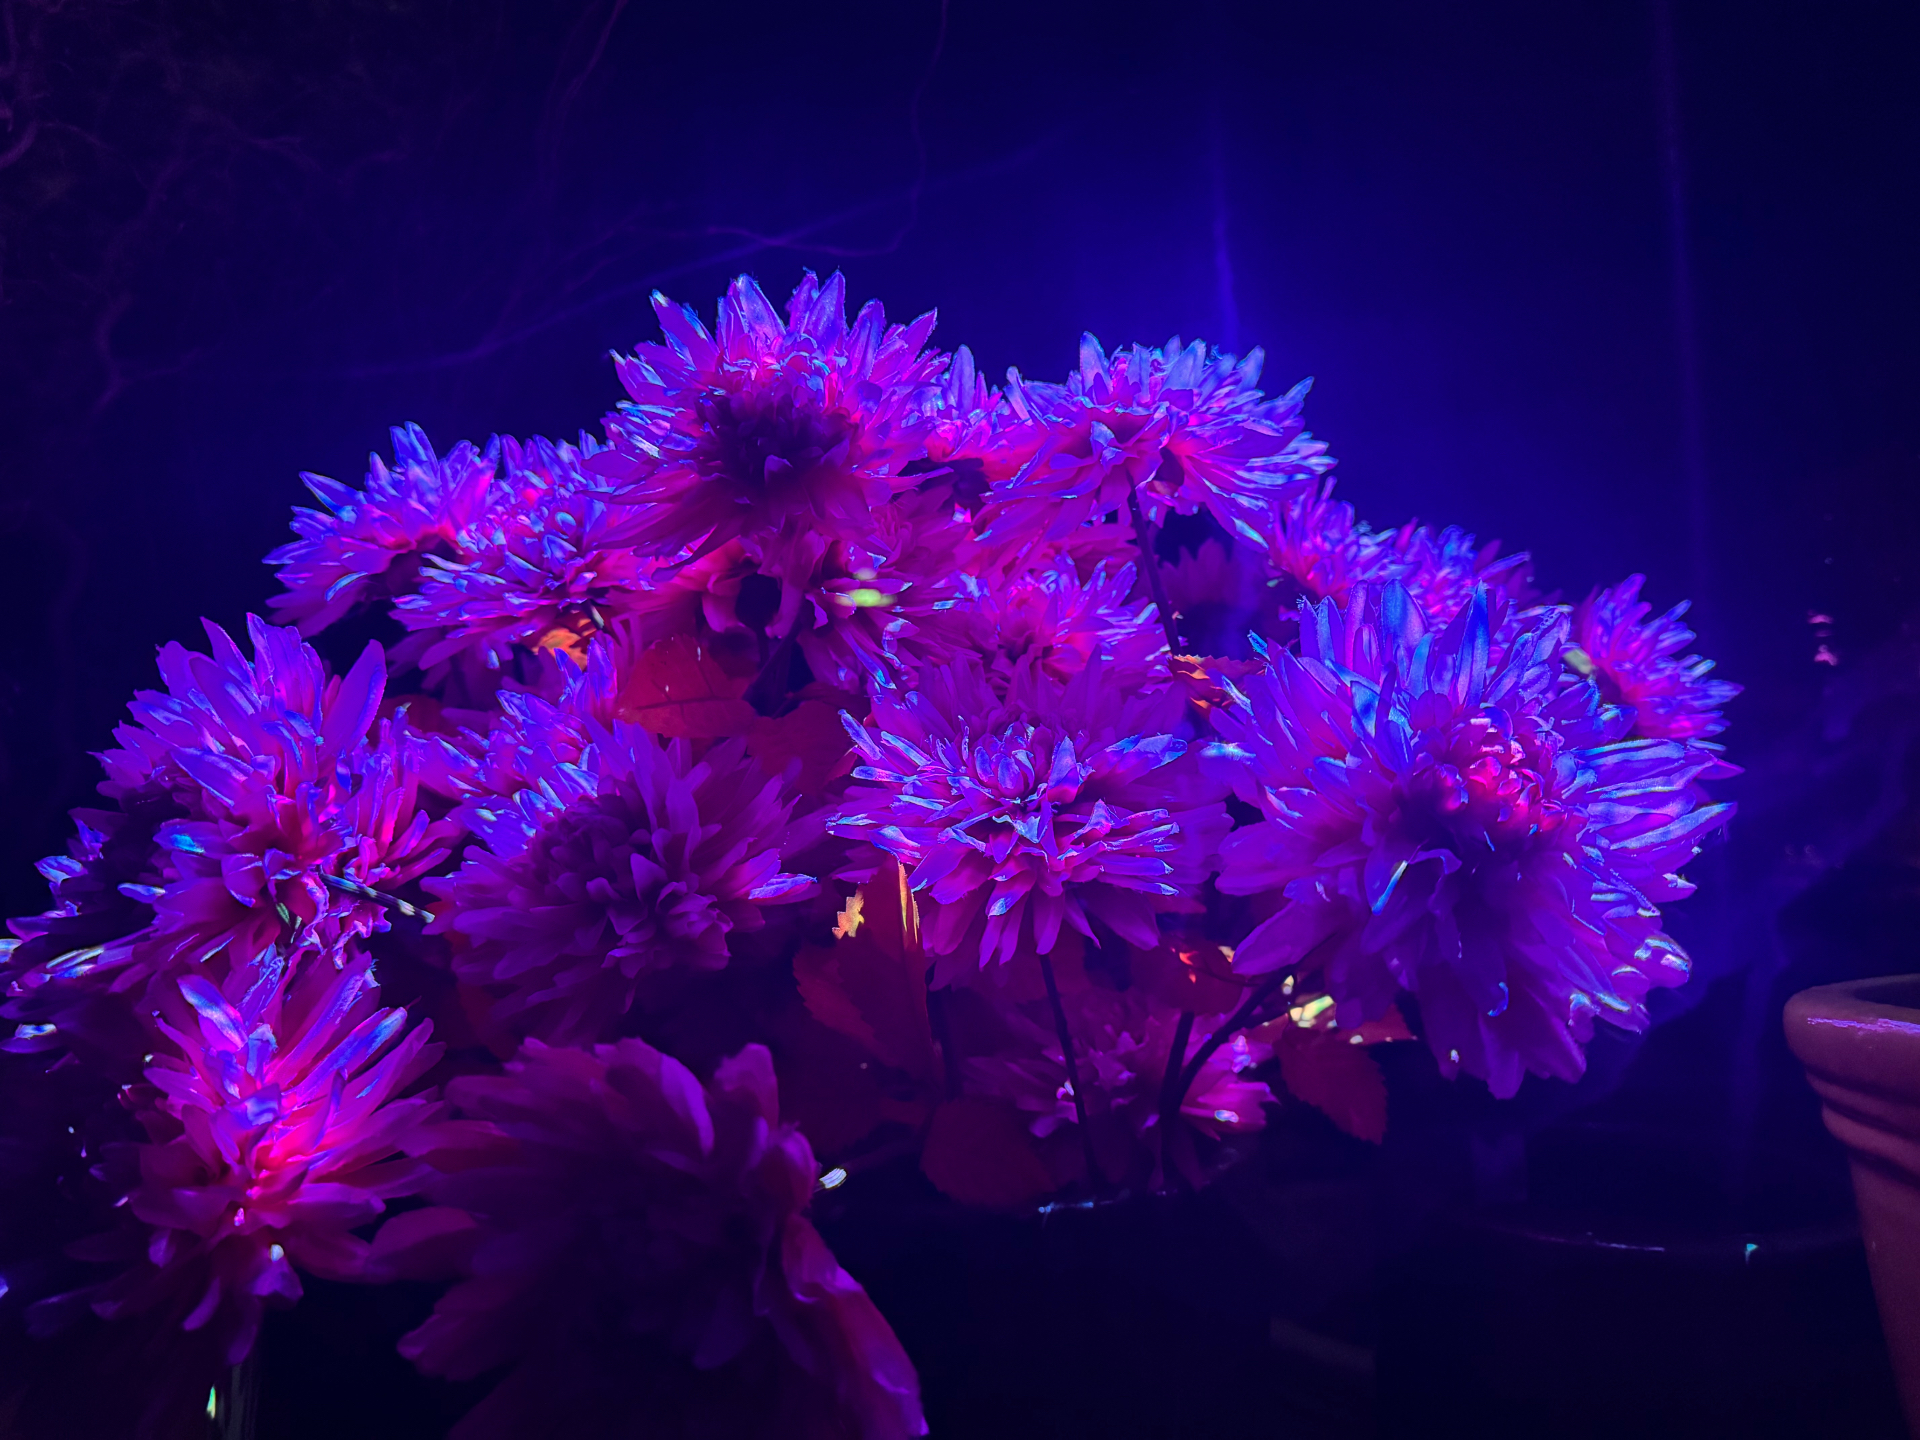
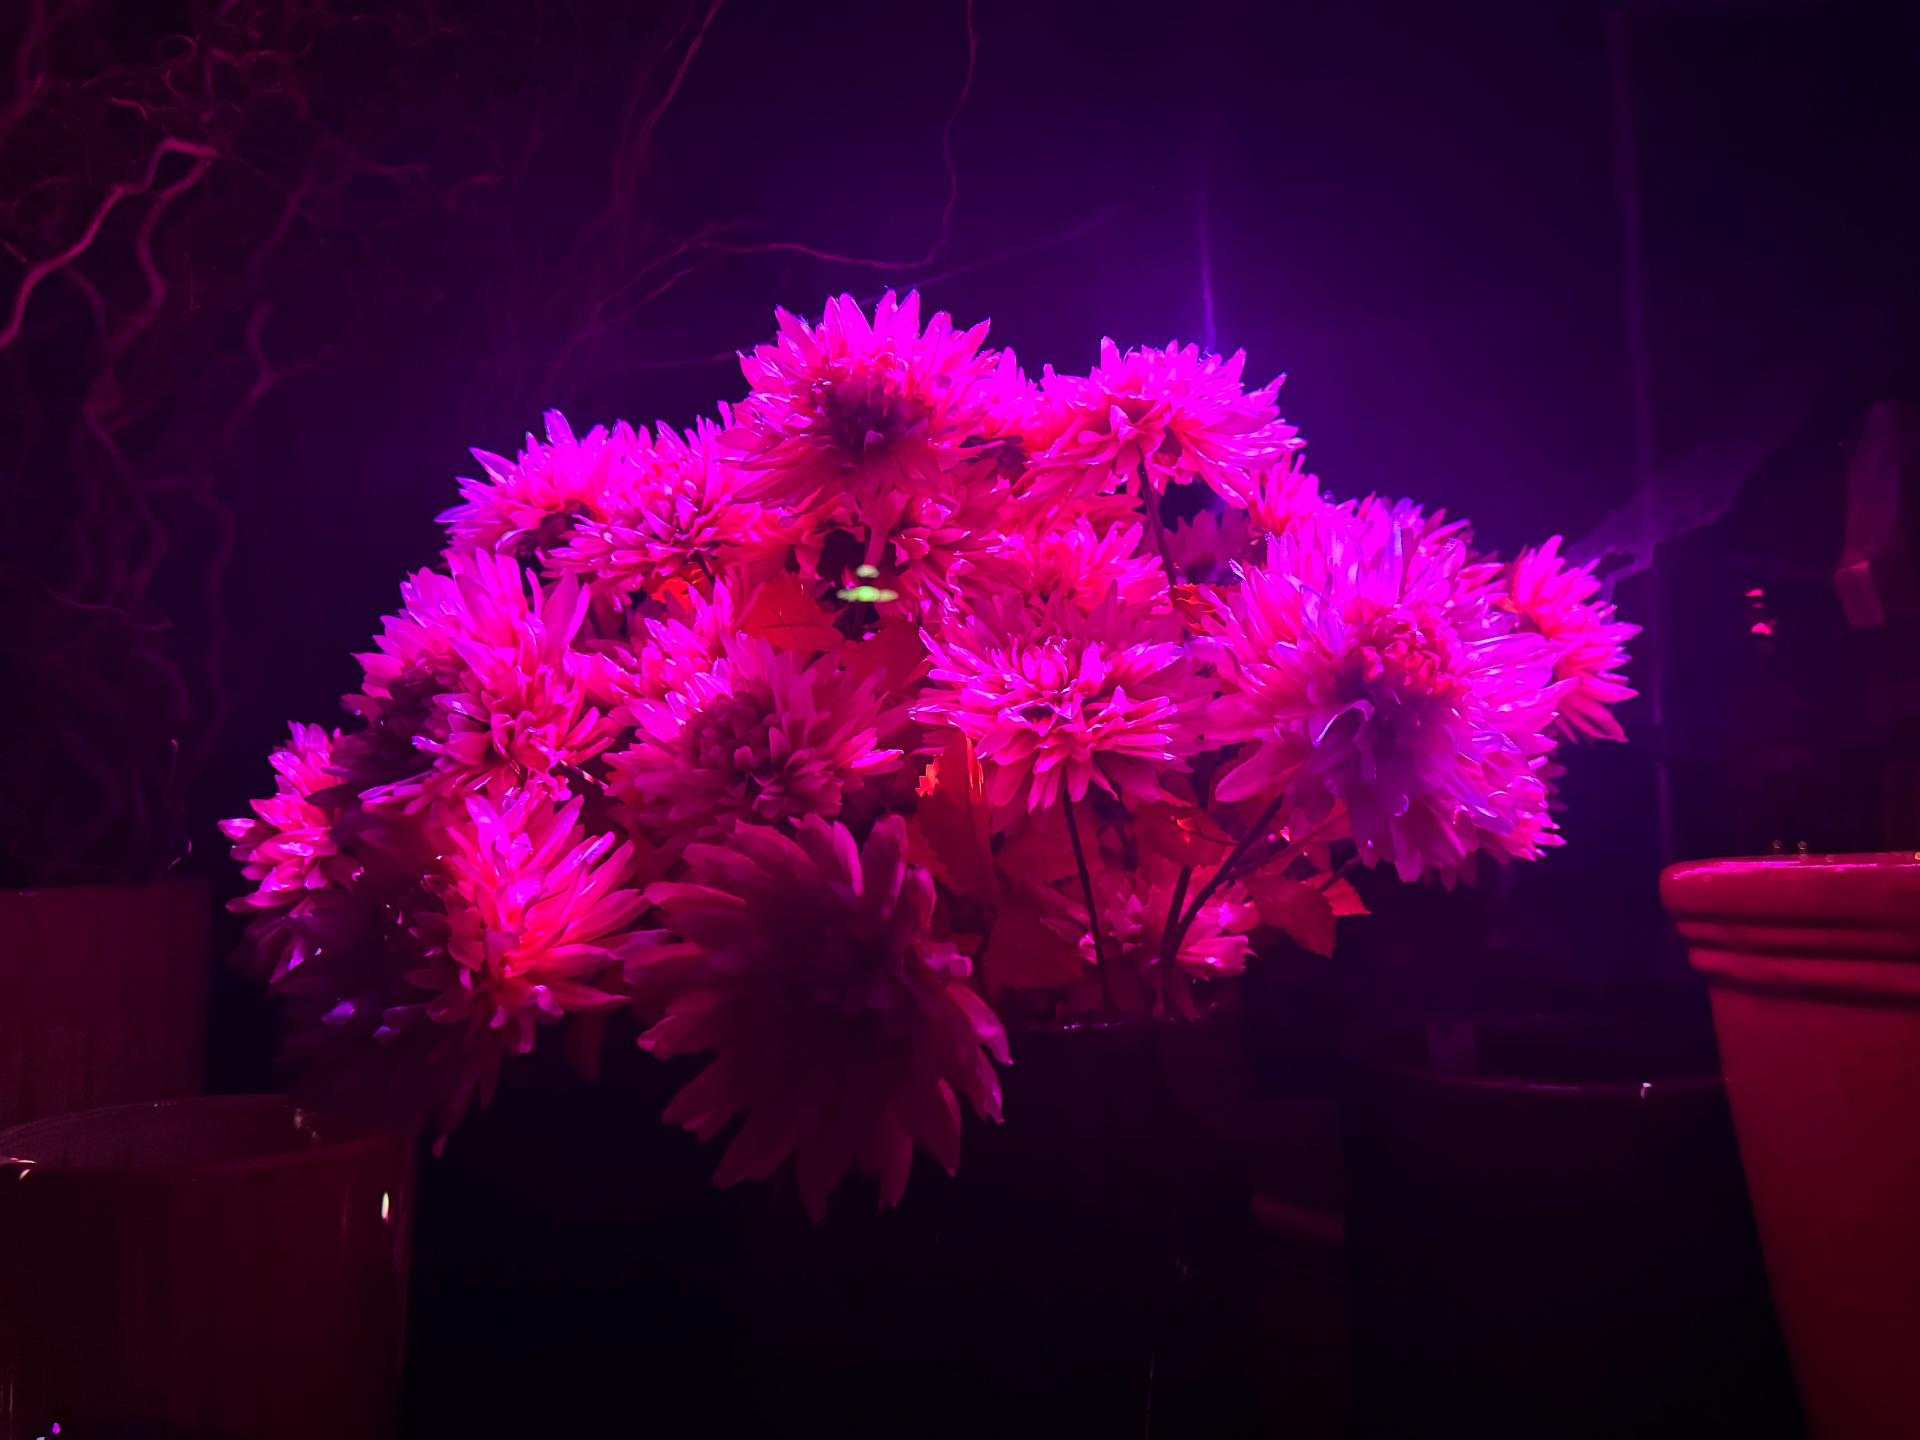
[ flowers ]

Flowerstallation

Flowerstallation — bloom study 1
bloom_study / 01▸ exposure 405nm
Flowerstallation — bloom study 2
bloom_study / 02▸ exposure 660nm

La próxima nota de laboratorio llegará pronto.