Carnet de Lab

Plant Journal

Notes du laboratoire : ce que les plantes mesurent, font et révèlent — avec sources. Chaque texte est écrit sans technique, seulement le récit du laboratoire.

[ 01 ]

La forêt comme réseau — et pourquoi elle n'est pas un ordinateur quantique

Imaginez : les filaments fongiques sous la forêt forment un système nerveux. Qui ou que sont alors un chêne ? Une fougère ? Une touffe d'herbe ?

Commençons par être honnête : cette métaphore est trop forte. Ce qui est certain, c'est que les mycorhizes relient les racines et transportent des substances — les plantes qui ne réalisent pas de photosynthèse par elles-mêmes, comme les espèces mycohétérotrophes, en dépendent même totalement pour vivre. Ce qui n'est *pas* prouvé : que de tels réseaux s'étendent partout dans les forêts, que les arbres s'en servent pour se nourrir et s'avertir mutuellement, et qu'ils reconnaissent leurs congénères apparentés. Sur les 28 études de terrain avec un blocage du réseau, cinq ont observé un effet positif sur les semis — et tout autant un effet négatif. Le « système nerveux » est donc plutôt un réseau partagé de nutriments et de signaux qu'un cerveau.

Dans ce réseau, les plantes ne sont pas de simples passagères, mais trois choses à la fois :

  • la centrale énergétique : le réseau fonctionne grâce aux sucres issus de la photosynthèse ; sans canopée, pas de courant ;
  • le capteur : chaque plante mesure localement la lumière, l'eau et les agressions, puis transmet ces informations au réseau ;
  • le point d'arrivée : ce que le champignon puise dans le sol — phosphore, azote — retourne dans la plante.

Le chêne y constitue la dorsale pérenne : le même nœud durant des décennies, voire des siècles, disposant d'importantes réserves. La fougère est l'outsider : une lignée végétale ancienne qui ne forme souvent pas ou peu de mycorhizes — un nœud qui ne participe presque pas. Les graminées forment la périphérie au maillage fin : champignons mycorhiziens à arbuscules, systèmes racinaires denses, durée de vie courte — beaucoup de bande passante, renouvellement rapide.

Et l'ordinateur quantique ? Il existe une ressemblance profonde : tous deux calculent au sein même de la matière. Le myxomycète qui converge vers le chemin le plus court est un processus de calcul analogique ; un ordinateur quantique fait interférer des amplitudes pour que les mauvais chemins s'annulent mutuellement. Dans les deux cas, on laisse la physique trouver la réponse. Mais les différences sont majeures : la forêt n'utilise ni superposition ni intrication comme outil de calcul — les signaux entre les arbres sont des corrélations classiques, pas de l'intrication. Les effets quantiques existent bel et bien dans la forêt (au niveau de la photosynthèse), mais il s'agit de biologie quantique, non d'informatique quantique.

La forêt n'est donc pas un ordinateur quantique. C'est un ordinateur analogique sans programmeur — et le myxomycète est la preuve que de tels ordinateurs existent.


Bron(nen): Karst et al. - 'Positive citation bias and overinterpreted results ... mycorrhizal networks' (Nature Ecology & Evolution, 2023, https://doi.org/10.1038/s41559-023-01986-1); Merckx et al. - 'Mycoheterotrophy in the wood-wide web' (Nature Plants, 2024, https://doi.org/10.1038/s41477-024-01677-0); Engel et al. - 'Evidence for wavelike energy transfer through quantum coherence in photosynthetic systems' (Nature, 2007, https://doi.org/10.1038/nature05678); Adamatzky - 'Physarum Machines' (World Scientific, 2010)

[ 02 ]

Le myxomycète jaune : le chemin le plus court à travers les flocons d'avoine

Placez deux flocons d'avoine dans une boîte de Pétri avec de l'agar, déposez un morceau de myxomycète jaune entre les deux — et attendez. En moins de vingt-quatre heures, l'organisme s'est étendu sur tout ce qui sépare les flocons ; au bout de quelques jours, presque tout s'est rétracté, à l'exception d'un tube épais : le chemin le plus court entre les deux flocons. Il s'agit de l'expérience la plus célèbre réalisée avec Physarum polycephalum, un organisme unicellulaire pouvant atteindre un mètre carré — qui n'est pas un champignon, malgré son nom, mais un protiste amiboïde abritant des milliers de noyaux au sein d'une même masse cellulaire.

Comment cela fonctionne : le myxomycète explore largement, et dans chaque tube, le flux dicte son destin. Là où circule un flux abondant de nutriments, le tube s'épaissit ; là où il y a peu de passage, il dépérit. Ce principe unique — plus de flux, un tube plus épais — suffit pour ne conserver à terme que le chemin le plus court. Des mathématiciens ont démontré que ce mécanisme converge systématiquement vers le trajet le plus court, indépendamment du réseau ou de la distribution initiale.

Plus célèbre encore que le labyrinthe : la carte de Tokyo. En plaçant des flocons d'avoine à l'emplacement des villes, le myxomycète a développé un réseau ressemblant de manière saisissante au réseau ferroviaire japonais — avec une efficacité comparable et même un soupçon de robustesse supplémentaire. Sur une carte en 3D de Los Angeles, il a réitéré l'exploit : son réseau s'est révélé, à l'échelle, plus court de plus de 65 km que le réseau routier conçu par l'homme.

Et que préfère-t-il consommer ? Des sucres — mais loin de tous. Dans les expériences classiques de chimiotaxie (1970-1978), l'organisme s'est dirigé avec le plus d'ardeur vers le glucose (dès 0,25 mM), suivi du maltose, du galactose et du mannose ; le lactose et la N-acétyl-glucosamine l'attirent également. En revanche, il n'a montré aucune réaction au saccharose, au fructose et au ribose — alors qu'il est pourtant capable de digérer le fructose. Percevoir et consommer relèvent donc de deux systèmes distincts : le 2-désoxy-glucose l'attire même s'il n'offre aucune valeur nutritive. Et cet engouement a ses limites : autour de 100 mM, l'attraction bascule en répulsion (osmose).

Pourquoi alors spécifiquement des flocons d'avoine ? Un flocon d'avoine se compose d'environ 70 % de glucides — de l'amidon qui se décompose graduellement pour libérer précisément ce glucose et ce maltose qui attirent le plus le myxomycète, ainsi que des protéines, des lipides et des minéraux utiles à sa croissance. En outre, il repère le flocon à distance : les sucres se diffusent à travers l'agar. Rien d'étonnant à ce que les flocons d'avoine soient depuis des décennies la nourriture standard de tout laboratoire de myxomycètes.

Ce que cela nous enseigne : un réseau capable de trouver les chemins les plus courts n'a pas besoin de cerveau — seulement d'une règle et de patience. Tout comme pour les plantes de notre installation : la réponse réside dans le système, non dans un centre de commande.

Comment réaliser l'expérience vous-même : 2 % d'agar dans une boîte de Pétri, des flocons d'avoine disposés à des emplacements précis, à l'obscurité et à l'humidité à 25 °C, une photo toutes les deux ou trois heures, puis une mesure des trajets après 48 à 72 heures (par ex. dans ImageJ).


Bron(nen): Nakagaki, Yamada & Toth - 'Maze-solving by an amoeboid organism' (Nature, 2000, https://doi.org/10.1038/35035159); Tero et al. - 'Rules for Biologically Inspired Adaptive Network Design' (Science, 2010, https://doi.org/10.1126/science.1177894); Bonifaci, Mehlhorn & Varma - 'Physarum can compute shortest paths' (2012, https://arxiv.org/abs/1106.0423); 'Investigating Los Angeles' urban roadway network' (2020, https://pmc.ncbi.nlm.nih.gov/articles/PMC6964692); Knowles & Carlile - 'Chemotactic response ... to sugars' (1978, https://doi.org/10.1099/00221287-108-1-17); Carlile - 'Nutrition and chemotaxis' (1970, https://doi.org/10.1099/00221287-63-2-221); Whiting & de Lacy Costello - 'Sensory fusion in Physarum' (2014, https://arxiv.org/abs/1403.4795)

[ 03 ]

Combien de tension produit une plante ? Et quel est l'effet de 35 degrés ?

Commençons par dissiper un malentendu : une plante ne « produit » pas de tension par jour. La tension est un état instantané — ce qui est mesurable, en revanche, ce sont des signaux : des pics et des ondes lentes consécutifs à des événements.

Les ordres de grandeur :

  • Dans la cellule (potentiel de membrane) : potentiel de repos de plusieurs dizaines de millivolts (négatif à l'intérieur) ; potentiels d'action de quelques dizaines à plus de 100 mV. Exemples classiques : soja ~60 mV sous la lumière, pomme de terre 40 ± 10 mV lors de l'herbivorie, dionée attrape-mouche plus de 100 mV.
  • À la surface (notre configuration — électrodes sur la feuille ou la tige, référence dans le sol) : bien plus petit. Réactions de stress mesurées : ~7–10 mV (arabette des dames, manioc), avec des pointes atteignant plusieurs dizaines de millivolts en cas de blessure ; les événements faibles ou lents se situent dans la plage sub-millivolt. Et les signaux des plantes sont lents : presque tous sous les 0,2 Hz.

Et qu'en est-il d'une journée à 35 degrés ? La chaleur est un stimulus : un réchauffement modéré hyperpolarise la membrane, mais au-delà de l'optimum (autour de 30 °C pour beaucoup de plantes), cela bascule en dépolarisation — de véritables signaux. Un choc thermique déclenche un potentiel d'action unique chez l'arabette des dames. Lors d'une journée chaude, attendez-vous donc à davantage de signaux (chaleur plus déshydratation), pas nécessairement à des tensions plus élevées : cela reste de l'ordre de quelques millivolts à la surface.

Deux mises en garde pour la mesure elle-même lors d'une telle journée : les électrodes Ag/AgCl sont sensibles à la température (tensions thermiques et dérive), et la plante transpire davantage tandis que le sol se dessèche — exactement la raison pour laquelle les laboratoires maintiennent la température constante et mesurent dans une cage de Faraday. À 35 degrés, on mesure donc plus de plante et plus d'artéfacts ; la distinction réside dans le motif : des ondes lentes couplées au stimulus par opposition à la dérive et au ronflement.


Source(s) : Volkov - 'Plants as Environmental Biosensors' (2012, https://pmc.ncbi.nlm.nih.gov/articles/PMC2635006); 'Evaluating Bacterial Nanocellulose Interfaces for Recording Surface Biopotentials from Plants' (2024, https://pmc.ncbi.nlm.nih.gov/articles/PMC11014089); Sukhov et al. - 'Electrical Signaling of Plants under Abiotic Stressors' (2021, https://pmc.ncbi.nlm.nih.gov/articles/PMC8509212); Fromm & Lautner - 'Electrical signals and their physiological significance in plants' (2007, https://onlinelibrary.wiley.com/doi/full/10.1111/j.1365-3040.2006.01614.x)

[ 04 ]

Une plante peut-elle émettre un son ? De la lumière au son

Les plantes transforment la lumière en énergie — des sucres. Du son peut-il en émerger ? Il existe trois voies, de la plus littérale à la plus poétique.

1\. Récolter l'énergie. Dans le sol autour des racines vivent des bactéries qui libèrent des électrons. Avec deux électrodes, on peut transformer une jardinière en pile à combustible — une pile à combustible microbienne végétale. Cela fonctionne : des entreprises comme Plant-e conçoivent des installations grâce à ce procédé depuis des années. Mais le rendement est faible, de l'ordre de milliwatts par mètre carré : suffisant pour un minuscule signal sonore ou un voyant lumineux, pas pour un haut-parleur. La plante peut donc alimenter sa propre voix — mais tout doucement.

2\. Rendre les signaux audibles. C'est la même voie que notre installation lumineuse : des électrodes placées sur une feuille ou une tige mesurent les fluctuations de tension. Tout comme nous les traduisons en lumière, il est possible de les convertir en sons — c'est ce que font des appareils comme Music of the Plants (depuis les années 1970, Damanhur) et PlantWave depuis plusieurs décennies. Une même base de code peut piloter à la fois la lumière et le son : un même signal, deux sens.

3\. La plante émet déjà du son. La réponse la plus forte : les plantes émettent des cliquetis ultrasonores (20–100 kHz), particulièrement en situation de stress. Lors d'épisodes de sécheresse, des chercheurs ont mesuré 35 cliquetis par heure chez le plant de tomate et 11 chez le tabac ; les plantes en bonne santé en émettaient moins d'un par heure. Ces cliquetis sont détectables à plusieurs mètres de distance et trahissent l'état de la plante — ils sont probablement provoqués par l'éclatement de petites bulles d'air dans les vaisseaux conducteurs. Ralentie pour devenir audible à l'oreille humaine, une plante ressemble au bruit d'une douce pluie de légers tapotements.

Pour notre installation, cela signifie : le son peut s'y ajouter — non pas comme une traduction de « ce que dit la plante », mais comme un sens supplémentaire reposant sur les mêmes signaux et mesures.


Source(s) : Khait et al. - 'Sounds emitted by plants under stress are airborne and informative' (Cell, 2023, https://doi.org/10.1016/j.cell.2023.03.009); Plant-e - de l'électricité à partir de plantes vivantes ( https://www.plant-e.com); Music of the Plants (Damanhur, https://www.musicoftheplants.com); PlantWave ( https://plantwave.com)

[ 05 ]

La lumière comme stimulus : pourquoi le cycle lumineux pilote les mesures

Les plantes ne voient pas la lumière, mais elles la mesurent. Les photorécepteurs dans la feuille enregistrent la quantité et le type de lumière présents, pilotant ainsi l'horloge jour-nuit de la plante : quand les stomates s'ouvrent, quand les sucres sont synthétisés et distribués, quand les cellules s'allongent.

Ce rythme constitue à la fois le bruit et le signal dans toute expérience d'électrophysiologie. Allumez la lumière, et en quelques secondes, la tension à travers la membrane cellulaire change en de multiples endroits — une réponse naturelle que l'on peut utiliser comme stimulus, à condition de la séparer du reste. C'est pourquoi les laboratoires travaillent avec des protocoles lumineux fixes : des périodes de lumière allumée et éteinte, des motifs constants et des périodes de contrôle durant lesquelles rien ne change. On sait ainsi quel changement provient de la lumière et quel changement a été produit par la plante elle-même.

La lumière peut aussi émaner de la plante elle-même : la bioluminescence, à l'image de la faible lueur des vers luisants au crépuscule, est le phénomène inverse — une lumière biologique qui transmet une information à d'autres organismes. Dans l'installation, une telle lumière subtile apparaît de temps à autre au milieu des plantes.

Pour les mesures, cela se traduit par une règle unique : le cycle lumineux est une variable de mesure, pas un décor.

[ 06 ]

Signaux sous terre : le réseau vivant dans le pot

Sous le pot, entre les racines, se trouve un monde aux flux mesurables. Les sols regorgent de vie microbienne, et une partie de cette vie est électrochimiquement active : des micro-organismes qui échangent des électrons avec leur environnement. Les chercheurs utilisent cette activité comme indicateur de la santé du sol — les signaux électriques entre la plante et la vie du sol indiquent ce dont le système a besoin.

De plus, il existe le réseau qui relie littéralement le sol : des champignons qui connectent les racines de différentes plantes grâce aux mycorhizes. Ils transportent des nutriments — et, selon un nombre croissant d'études, également des informations : un avertissement ou un signal de stress peut voyager d'une plante à l'autre via le réseau fongique. L'ampleur exacte de ce rôle fait encore pleinement l'objet de recherches ; les résultats sont prometteurs mais pas encore totalement cristallisés.

Pour notre installation, c'est la troisième couche : les plantes dans le hall sont plantées dans du terreau, et ce sol n'est pas un substrat inerte, mais un réseau vivant. Ce qui se passe dans le pot est peut-être le plus ancien système de communication de la pièce.

Cette couche est particulièrement intéressante pour la surveillance : les signaux du sol peuvent être mesurés sans toucher la plante elle-même — exactement ce dont on a besoin pour des collections vulnérables.


Source(s) : Washington State University - 'Engineers, plant scientists decode electrochemical soil signals' (2026, https://research.wsu.edu/news/engineers-plant-scientists-decode-electrochemical-soil-signals); arXiv 2509.08434 (preprint) - 'Information and Communication Theoretical Foundations of the Internet of Plants' ( https://arxiv.org/abs/2509.08434)

[ 07 ]

Où commence un signal : des capteurs suivent les signaux végétaux à travers toute la plante

Où commence un signal lorsqu'on touche une feuille ? Quiconque mesure l'électricité des plantes connaît cette limite : avec un ou deux points de mesure, on sait qu'il se passe quelque chose, mais pas où cela a commencé ni où cela va. Des chercheurs à Singapour et à l'A\*STAR ont changé la donne : grâce à un ensemble souple et flexible de capteurs le long du pétiole de la Mimosa pudica — la plante qui replie ses feuilles au toucher —, ils ont suivi le signal sur toute sa longueur.

Ces mesures ont permis d'établir des cartes spatio-temporelles : on voit le signal naître, se propager vers la base du pétiole, et ce n'est que là que la feuille s'affaisse. Qu'il s'agisse de toucher, de froid ou de chaleur, ils ont observé le même schéma : d'abord mesurer et signaler, puis seulement bouger — le mouvement lui-même se produisant en moins d'une demi-seconde. La même approche a également fonctionné avec d'autres plantes, comme l'arabette des dames et le pak-choï.

Ce détail est bien plus qu'une simple curiosité. Il montre qu'un événement sur une feuille voyage électriquement à travers la plante avant que la réaction visible ne suive. Pour quiconque souhaite mesurer les signaux végétaux — y compris dans notre installation —, c'est l'essentiel : le signal précède la réponse.

Les sources se trouvent au bas de cet article : le communiqué de presse de NTU Singapore et l'article scientifique dans Nature Electronics.


Source(s) : NTU Singapore - 'Soft electrode array maps electrical signals travelling through plants' (15 sep 2026, https://www.ntu.edu.sg/mse/news-events/news/detail/soft-electrode-array-maps-electrical-signals-travelling-through-plants); article scientifique dans Nature Electronics (mai 2026)

[ 08 ]

Le langage des odeurs : ce que les plantes sentent — et comment

Une plante qui est endommagée n'émet pas de son mais un mélange : des composés organiques volatils — COV. De petites molécules qui s'évaporent des feuilles, des tiges et des fleurs, et qui préparent déjà les plantes voisines à renforcer leurs défenses. Que les odeurs transportent des informations était déjà connu. La manière exacte dont une plante les perçoit reste en grande partie une énigme — et c'est précisément à ce sujet que de nouvelles synthèses sont parues en 2026.

Ce qui rend cela singulier : les plantes ne reconnaissent pas certaines odeurs directement, mais par un détour. Certains récepteurs semblent d'abord convertir la molécule volatile en une forme plus active. Le salicylate de méthyle, par exemple, est transformé dans la feuille en acide salicylique — une molécule signal classique — et ce n'est qu'alors que la défense démarre. Et le message ne réside pas dans une seule substance : c'est la proportion du mélange qui détermine le message transmis. Omettre un seul composant d'un mélange peut déjà rendre le message illisible.

Une nouvelle étude a suivi cette conversation sans toucher aux plantes : grâce à des enregistrements en séries temporelles, les récepteurs ont réagi aux odeurs de plantes endommagées, même lorsque les 'odeurs de feuilles vertes' les plus connues manquaient. Les plantes endommagées émettaient en moyenne environ 22 composés ; les plantes saines environ 10.

Pour notre installation, où l'aspect électrique occupe une place centrale, il s'agit du deuxième grand langage : l'odeur voyage dans l'air, le signal voyage à travers la plante. Suivre les deux, c'est suivre une conversation sur deux canaux.


Source(s) : The Plant Journal - 'Molecular insights into volatile organic compound sensing and signaling in plants' (14 mars 2026, https://pmc.ncbi.nlm.nih.gov/articles/PMC12988820); Frontiers in Plant Science - 'Revisiting volatile organic compounds' role in plant communication' (2026, https://www.frontiersin.org/journals/plant-science/articles/10.3389/fpls.2026.1829872/full)

[ 09 ]

Racines ou sable : qui conduit le signal dans le pot ?

Placez deux plantes dans un même pot et envoyez un faible signal de tension à travers l'une d'elles : qui le transporte vers l'autre — les racines ou la terre ? La réponse est décevante : la terre. Pas le sable lui-même (le sable sec ne conduit rien, c'est du verre), mais l'eau qu'il contient avec ses ions dissous. Le terreau humide est un électrolyte ; tout le volume situé entre les deux plantes y participe. Les racines constituent un chemin parallèle bien plus étroit et à haute impédance — une part minime.

C'est précisément pourquoi la « communication » entre plantes dans un pot partagé est si suspecte. Si vous mesurez un signal au niveau de la plante deux, il y a de fortes chances que vous mesuriez la répartition de la tension dans la terre humide, et non un message émis par la plante. Les chercheurs travaillant avec des électrodes dans le sol connaissent bien le problème : lors de la cartographie des racines, le courant injecté fuit à travers le sol et biaise la mesure. Et des appareils comme PhytlSigns mesurent même les signaux des plantes par rapport au sol comme référence — la terre fait donc toujours partie du circuit.

Comment le vérifier soi-même (quatre tests, dans cet ordre) :

1. Sans plantes : injectez le signal entre les deux emplacements des plantes dans le même pot. Le recevez-vous ? Dans ce cas, c'est la terre. 2. Sec contre humide : répétez l'opération avec de la terre sèche et de la terre humide — le signal varie-t-il avec l'humidité ? Alors il s'agit du film d'eau. 3. Mise à la terre intermédiaire : insérez une plaque métallique mise à la terre entre les deux plantes. Le signal disparaît-il ? Alors il passait par le sol. 4. Deux pots : la configuration de référence. Ce qui subsiste lorsque la terre est séparée correspond à ce qui transite réellement par les plantes.

Conclusion pour notre dispositif : dans un pot partagé rempli de terre humide, le sol est le meilleur conducteur — et donc la plus grande source de corrélations illusoires. Si vous voulez savoir ce que font réellement les plantes, il faut réduire le sol au silence (séparation, mise à la terre ou blindage actif) — exactement comme le préconise déjà l'étude de faisabilité.

Et la mise à la terre est-elle la solution ?

Tout dépend de ce que vous entendez par là. Une référence de mesure — un point zéro bien défini, par exemple une électrode dans la terre de cette plante précise — est utile et standard : PhytlSigns mesure la plante par rapport au substrat et accorde une attention explicite à la mise à la terre de l'ensemble de l'instrument. Mais la terre de protection (la prise murale, le châssis métallique, la conduite d'eau) est précisément une erreur : elle crée des boucles de masse, capte des ronflements et relie vos canaux par une voie secondaire. La règle est : le blindage peut être relié à la terre, le signal reste flottant — alimentation par batterie, amplificateurs isolés, câbles blindés courts.

Et dans un pot partagé, la mise à la terre ne résout pas la diaphonie : le sol relie tout de toute façon, et une électrode de terre supplémentaire n'est qu'un nœud de plus dans le même bouillon — le courant injecté gagne même une voie de retour plus facile. Ce qui fonctionne en revanche, par ordre d'efficacité : séparer (deux pots), une plaque mise à la terre entre les plantes, un blindage actif, et une mesure différentielle par canal avec des amplificateurs isolés — afin que le sol devienne un mode commun que l'amplificateur peut éliminer.

Et un bain d'eau partagé ?

Mettez deux plantes ensemble dans de l'eau avec un peu de sable et envoyez le signal via les feuilles : vous obtenez alors le court-circuit auquel vous pensez — au sens pratique. L'eau chargée d'ions présente une résistance de quelques centaines d'ohms entre les zones racinaires, tandis que le trajet au sein de la plante de la feuille à la racine se chiffre en kilo- ou mégaohms. Le courant privilégie donc massivement l'eau : les deux systèmes racinaires ne forment plus qu'un seul nœud électrique, et ce que vous mesurez sur l'autre feuille est le champ de potentiel du bain — et non de la plante. Il n'y a aucun danger à l'échelle des microvolts : ce n'est pas un court-circuit destructeur, simplement une mesure qui ne révèle plus rien sur les plantes. (Ce n'est qu'avec des courants plus élevés qu'apparaissent l'électrolyse, la polarisation et l'endommagement des racines.)

Ce qui est possible en revanche : un réservoir d'eau propre à chaque plante (séparé), ou — si un bain unique est nécessaire — maintenir les feuilles et les électrodes au sec au-dessus de l'eau, effectuer une mesure différentielle par plante par rapport à sa propre référence, isoler galvaniquement les canaux et, si nécessaire, appliquer un blindage actif au bain. Et toujours le même test : effectuez d'abord la mesure sans plantes. Mesurez-vous le bain ? Alors vous mesurez le bain.

Comment reconnaître le court-circuit dans le spectre ?

L'eau elle-même conduit toutes les fréquences — du courant continu jusqu'au mégahertz — le court-circuit n'est donc pas sélectif en fréquence. Mais c'est précisément là le signe distinctif : la plante, elle, est sélective. Le tissu végétal avec ses membranes se comporte comme un filtre passe-bas (les véritables signaux végétaux sont lents, sous 0,2 Hz), alors qu'à travers l'eau, tous les parasites rapides passent également : le ronflement à 50 Hz et ses harmoniques, ainsi que n'importe quelle tonalité de test injectée.

Ainsi : recevoir de nombreuses fréquences élevées (dizaines à milliers de Hz) = suspect — eau, câbles, réseau électrique. Fréquences très basses, lentes (inférieures à 1 Hz) = potentiellement la plante. Et comme les électrodes elles-mêmes présentent une impédance élevée en dessous de ~1 Hz (double couche), le trajet par l'eau fonctionne particulièrement bien entre quelques centaines de Hz et quelques kHz — précisément là où la plante ne laisse plus rien passer.

Le test : balayez une onde sinusoïdale de 0,1 Hz à 1 kHz et observez l'amplitude et la phase. Une transmission plate ou croissante aux fréquences élevées → l'eau. Un profil de type passe-bas avec une cassure dans les basses fréquences → le tissu végétal.


Source(s) : 'Non-Invasive Phenotyping of Sugar Beet and Maize Roots Using Field-Scale Spectral Electrical Impedance Tomography' (2025, https://pmc.ncbi.nlm.nih.gov/articles/PMC12415421); 'Electrophysiological assessment of plant status outside a Faraday cage' (2019, https://pmc.ncbi.nlm.nih.gov/articles/PMC6864072); ERT-basisprincipes (SOIL, 2025, https://soil.copernicus.org/articles/11/67); 'Plant electrical signals: A multidisciplinary challenge' (2021, https://www.sciencedirect.com/science/article/pii/S0176161721000572)
Journal

Mises à jour, observations et développements de l'installation Plantstallation.

15 octobre 2026Développement

Nœuds V2 installés

Les six nœuds autonomes ont été installés dans l'installation. Chaque nœud mesure le bio-potentiel des plantes. Les premières mesures montrent des signaux stables des plantes.

10 octobre 2026Observation

Premier bio-spike détecté

Le nœud-03 a détecté un bio-spike fort de 412mV sur la feuille #7. C'est la première mesure significative depuis l'installation des nouveaux capteurs. Le pic corrèle avec un visiteur à proximité de la plante.

5 octobre 2026Technique

Patch TouchDesigner mis à jour

Le patch TouchDesigner 'breath' a été mis à jour avec de nouveaux paramètres pour la projection lumineuse. L'intensité répond maintenant en temps réel aux signaux bio des plantes. L'intensité moyenne est d'environ 0,74.

1 octobre 2026Exposition

Préparation exposition Wijngaard 16

L'installation est en cours de préparation pour l'exposition à Wijngaard 16. Tous les composants ont été testés et l'éclairage a été optimisé pour l'espace. Les plantes ont été déplacées vers leurs positions finales.

Module de monitoring en temps réel
NODE-03 · LIVE
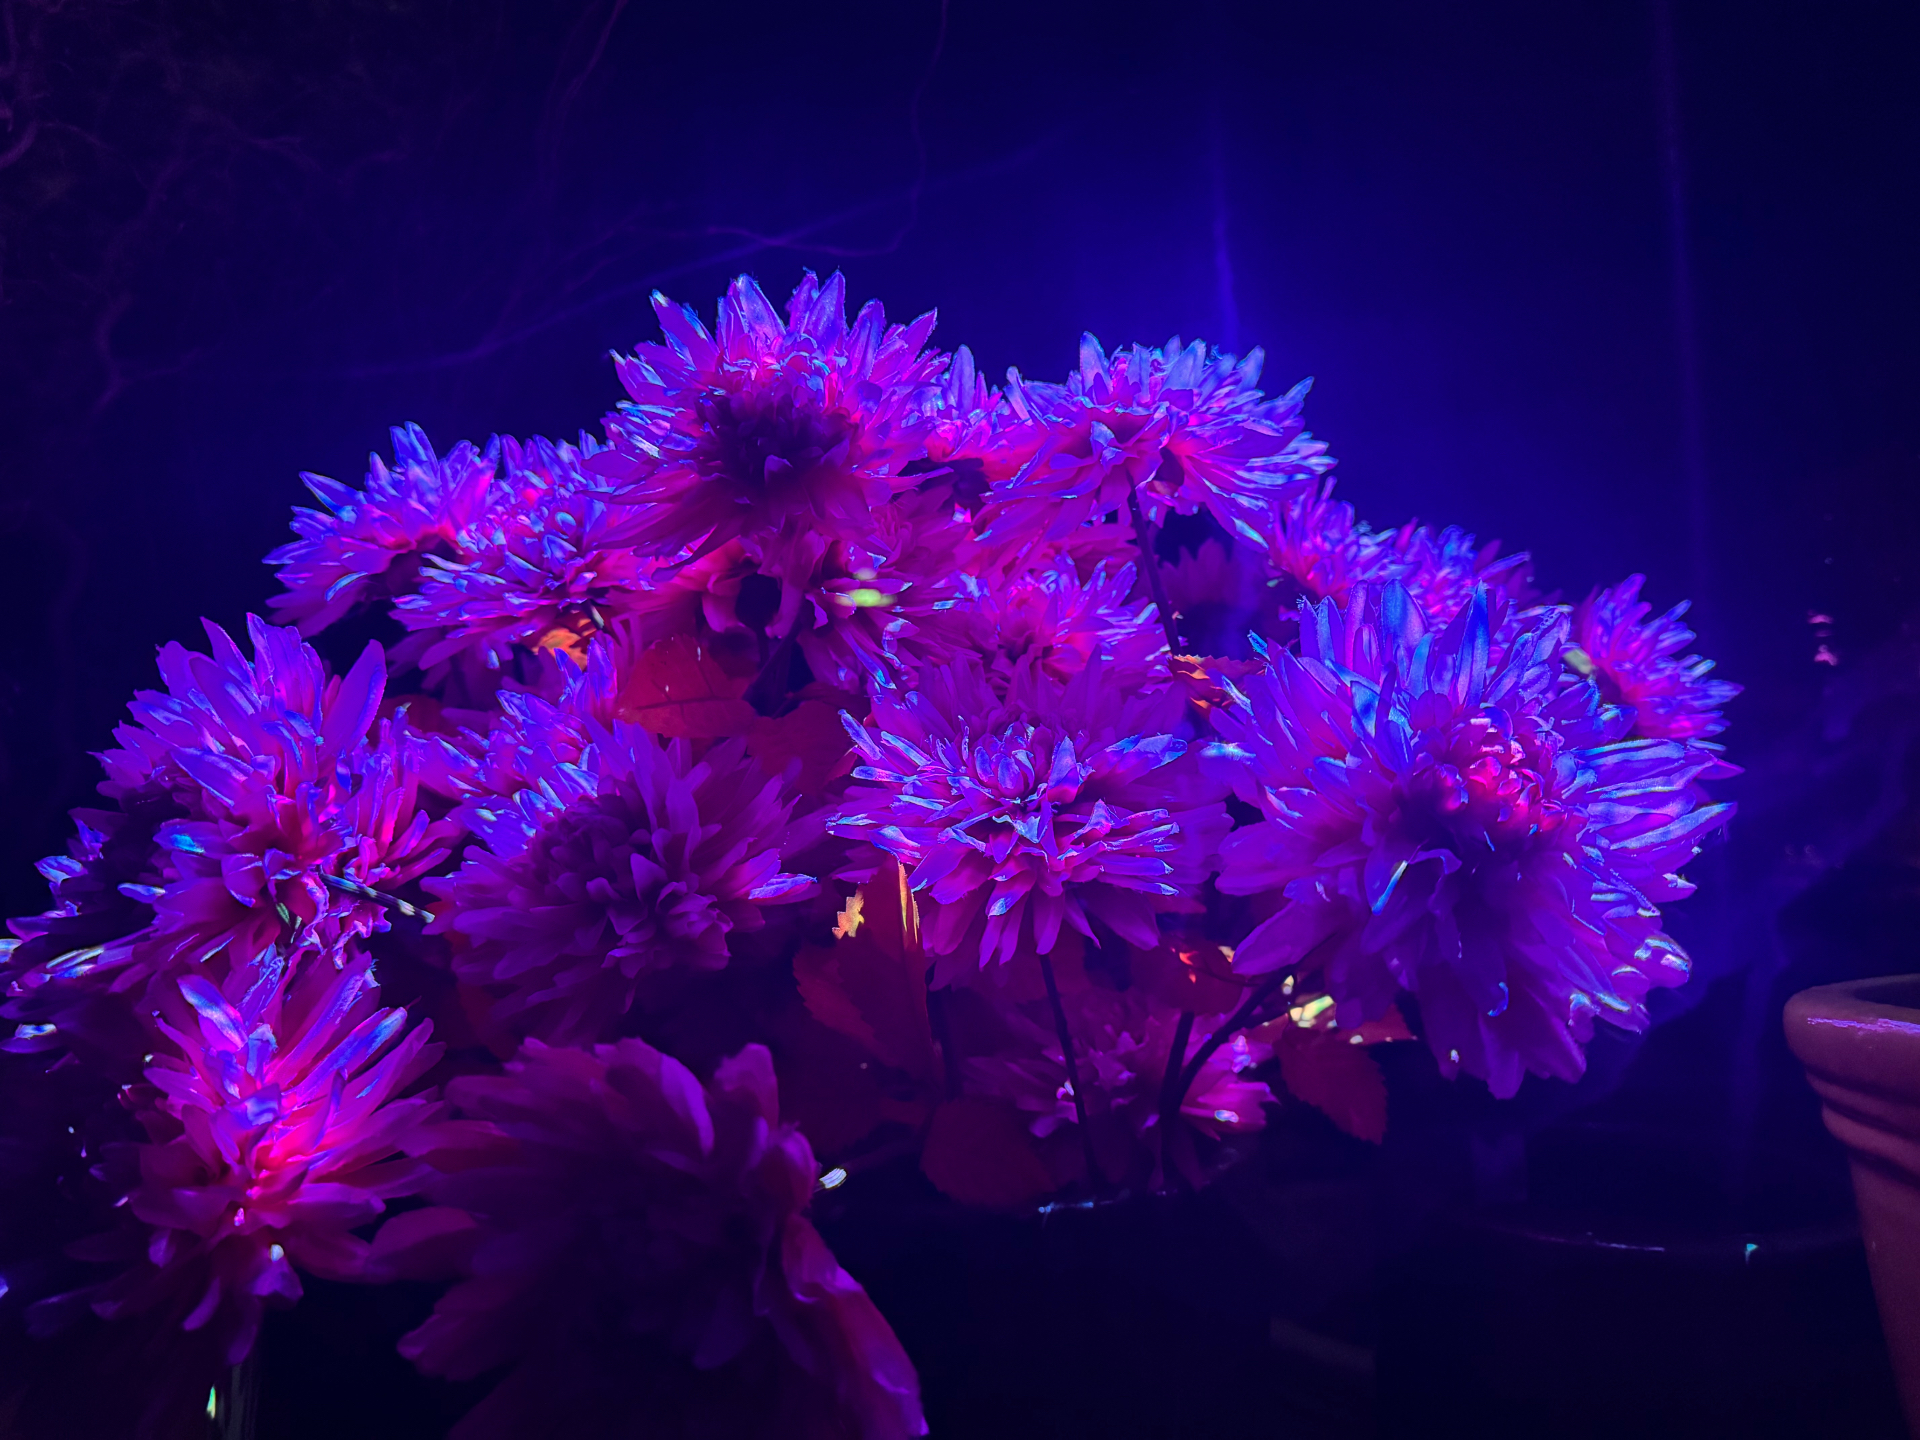
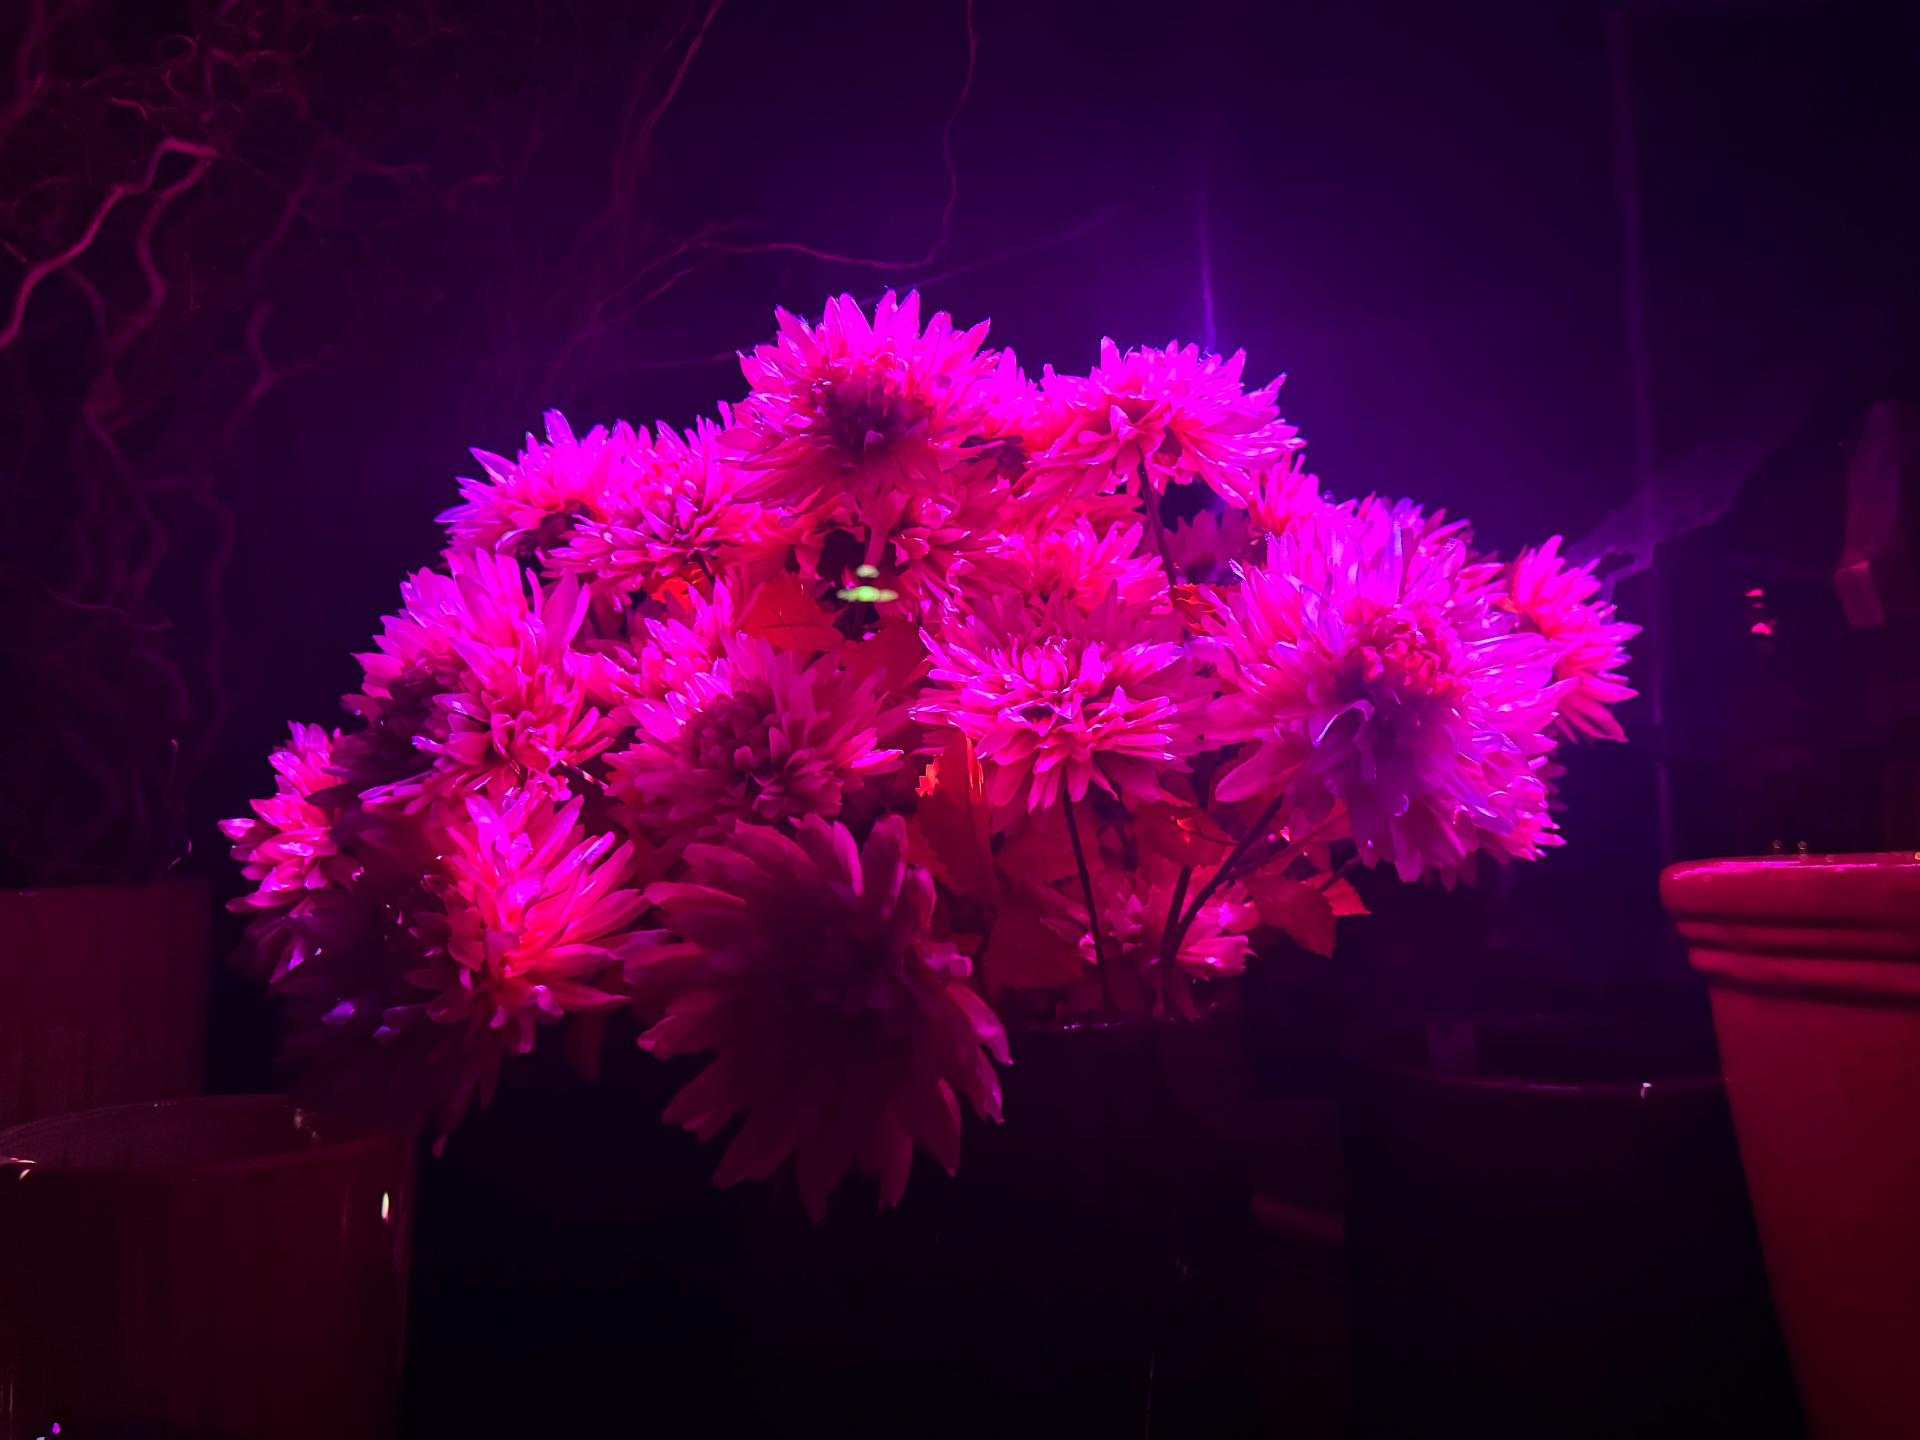
[ flowers ]

Flowerstallation

Flowerstallation — bloom study 1
bloom_study / 01▸ exposure 405nm
Flowerstallation — bloom study 2
bloom_study / 02▸ exposure 660nm

La prochaine note de lab arrive bientôt.