Lab Journal

Plant Journal

Notities uit het lab: wat planten meten, doen en laten zien — met bronnen. Elk stuk is geschreven zonder techniek, alleen het laboratoriumverhaal.

[ 01 ]

Het bos als netwerk — en waarom het geen quantumcomputer is

Stel: de schimmeldraden onder het bos zijn een zenuwstelsel. Wie of wat is dan een eik? Een varen? Een graspol?

Eerst de eerlijke kant: die metafoor is te sterk. Wat vaststaat is dat mycorrhiza wortels verbinden en stoffen vervoeren — planten die zelf niet fotosynthetiseren, zoals mycoheterotrofe soorten, leven er zelfs volledig van. Wat níet bewezen is: dat zulke netwerken overal in bossen liggen, dat bomen elkaar er via voeden en waarschuwen, en dat ze verwanten herkennen. Van de 28 veldstudies met een netwerk-blokkade vonden er vijf een positief effect op zaailingen — en evenveel een negatief effect. Het "zenuwstelsel" is dus eerder een gedeeld nutriënten- en signaalnet dan een brein.

In dat net zijn de planten geen passagiers maar drie dingen tegelijk:

  • de energiecentrale: het net draait op suikers uit fotosynthese; zonder bladerdek geen stroom;
  • de sensor: elke plant meet lokaal licht, water en schade en stuurt dat het net in;
  • het eindpunt: wat de schimmel uit de bodem haalt — fosfor, stikstof — gaat terug de plant in.

De eik is daarin de langlevende backbone: decennia tot eeuwen dezelfde knoop, met een grote voorraad. De varen is de buitenstaander: een oude plantenlijn die vaak géén of zwakke mycorrhiza vormt — een knoop die nauwelijks meedoet. De grassen zijn de fijnmazige rand: arbusculaire schimmels, dichte wortelstelsels, korte levensduur — veel bandbreedte, snelle vervanging.

En de quantumcomputer? Er is één diepe overeenkomst: beide rekenen in het materiaal zelf. De slijmzwam die naar de kortste weg convergeert is een analoog rekenproces; een quantumcomputer laat amplituden interfereren zodat foute paden elkaar uitdoven. In beide gevallen laat je de fysica het antwoord vinden. Maar de verschillen zijn groot: het bos kent geen superpositie of verstrengeling als rekenmiddel — signalen tussen bomen zijn klassieke correlaties, geen verstrengeling. Quantum-effecten bestaan wél in het bos (in de fotosynthese), maar dat is quantumbiologie, geen quantumcomputing.

Het bos is dus geen quantumcomputer. Het is een analoge computer zonder programmeur — en de slijmzwam is het bewijs dat zulke computers bestaan.


Bron(nen): Karst et al. - 'Positive citation bias and overinterpreted results ... mycorrhizal networks' (Nature Ecology & Evolution, 2023, https://doi.org/10.1038/s41559-023-01986-1); Merckx et al. - 'Mycoheterotrophy in the wood-wide web' (Nature Plants, 2024, https://doi.org/10.1038/s41477-024-01677-0); Engel et al. - 'Evidence for wavelike energy transfer through quantum coherence in photosynthetic systems' (Nature, 2007, https://doi.org/10.1038/nature05678); Adamatzky - 'Physarum Machines' (World Scientific, 2010)

[ 02 ]

De gele slijmzwam: de kortste weg door de havermout

Leg twee havermoutvlokken in een petrischaal met agar, zet er een stukje gele slijmzwam tussen — en wacht. Binnen een etmaal heeft het organisme zich uitgespreid over alles wat tussen de vlokken ligt; na een paar dagen is bijna alles weer ingetrokken, behalve één dikke buis: de kortste route tussen de twee vlokken. Dit is het beroemdste experiment met Physarum polycephalum, een eencellig organisme dat wel een vierkante meter groot kan worden — geen schimmel, ondanks de naam, maar een amoebe-achtige protist met duizenden kernen in één celmassa.

Hoe het werkt: de zwam verkent breed, en in elke buis bepaalt de doorstroming het lot. Waar veel voedselstroom passeert wordt de buis dikker; waar weinig stroomt, verschrompelt hij. Dat ene principe — meer doorstroming, dikkere buis — is genoeg om uiteindelijk de kortste weg over te houden. Wiskundigen hebben bewezen dat dit mechanisme altijd naar de kortste route convergeert, ongeacht het netwerk of de beginverdeling.

Bekender nog dan het doolhof is de kaart van Tokio: met havermout op de plek van de steden bouwde de slijmzwam een netwerk dat verrassend veel op het Japanse spoorwegnet lijkt — vergelijkbaar efficiënt en zelfs een tikje robuuster. Op een 3D-kaart van Los Angeles deed hij hetzelfde: zijn netwerk was omgerekend ruim 65 km korter dan het menselijke wegennet.

En wat eet hij het liefst? Suikers — maar lang niet allemaal. In de klassieke chemotaxis-experimenten (1970-1978) kwam de zwam het sterkst op glucose af (al bij 0,25 mM), gevolgd door maltose, galactose en mannose; ook lactose en N-acetyl-glucosamine lokken hem. Op sucrose, fructose en ribose reageerde hij niet — terwijl hij fructose wél kan verteren. Voelen en eten zijn dus twee aparte systemen: 2-deoxy-glucose lokt hem zelfs terwijl het geen voedingswaarde heeft. En er zit een grens aan de liefde: rond 100 mM slaat de aantrekking om in afstoting (osmose).

Waarom dan juist havermout? Een havermoutvlok is voor ongeveer 70% koolhydraat — zetmeel dat geleidelijk afbreekt tot precies die glucose en maltose waar de zwam het sterkst op afkomt, plus eiwitten, vetten en mineralen voor de groei. Bovendien ruikt hij de vlok al van een afstand: de suikers diffunderen door de agar. Geen wonder dat havermout sinds jaar en dag het standaardvoer van elk slijmzwamlab is.

Wat het ons leert: een netwerk dat de kortste wegen vindt, heeft geen hersenen nodig — alleen één regel en geduld. Net als bij de planten in onze installatie: het antwoord zit in het systeem, niet in een centrum.

Zo doe je de test zelf: 2% agar in een petrischaal, havermoutvlokken op vaste plekken, donker en vochtig bij 25 °C, elke paar uur een foto, en na 48–72 uur de routes opmeten (bv. in ImageJ).


Bron(nen): Nakagaki, Yamada & Toth - 'Maze-solving by an amoeboid organism' (Nature, 2000, https://doi.org/10.1038/35035159); Tero et al. - 'Rules for Biologically Inspired Adaptive Network Design' (Science, 2010, https://doi.org/10.1126/science.1177894); Bonifaci, Mehlhorn & Varma - 'Physarum can compute shortest paths' (2012, https://arxiv.org/abs/1106.0423); 'Investigating Los Angeles' urban roadway network' (2020, https://pmc.ncbi.nlm.nih.gov/articles/PMC6964692); Knowles & Carlile - 'Chemotactic response ... to sugars' (1978, https://doi.org/10.1099/00221287-108-1-17); Carlile - 'Nutrition and chemotaxis' (1970, https://doi.org/10.1099/00221287-63-2-221); Whiting & de Lacy Costello - 'Sensory fusion in Physarum' (2014, https://arxiv.org/abs/1403.4795)

[ 03 ]

Hoeveel spanning maakt een plant? En wat doet 35 graden?

Eerst een misverstand opruimen: een plant "maakt" geen spanning per dag. Spanning is een momentane toestand — wat wél meetbaar is, zijn signalen: pieken en trage golven die op gebeurtenissen volgen.

De ordes van grootte:

  • In de cel (membraanpotentiaal): rustpotentiaal van tientallen millivolts (binnen negatief); actiepotentialen van enkele tientallen tot ruim 100 mV. Klassieke voorbeelden: sojaboon ~60 mV bij licht, aardappel 40 ± 10 mV bij vraat, venusvliegenval ruim 100 mV.
  • Aan het oppervlak (onze opstelling — elektroden op blad of stengel, referentie in de grond): veel kleiner. Gemeten stressreacties: ~7–10 mV (zandraket, cassava), met uitschieters tot tientallen millivolts bij verwonden; zwakke of trage gebeurtenissen zitten in het sub-mV-bereik. En plantensignalen zijn traag: vrijwel alles onder 0,2 Hz.

En dan de 35-gradendag. Hitte is een stimulus: matige opwarming hyperpolariseert het membraan, maar boven het optimum (voor veel planten rond 30 °C) slaat het om in depolarisatie — echte signalen. Een hitteschok lokt bij zandraket een enkele actiepotentiaal uit. Verwacht op een hete dag dus méér signalen (hitte plus uitdroging), niet per se hogere spanningen: het blijft een paar millivolt aan het oppervlak.

Twee waarschuwingen voor de meting zelf op zo'n dag: Ag/AgCl-elektroden zijn temperatuurgevoelig (thermische spanningen en drift), en de plant verdampt meer terwijl de grond uitdroogt — precies waarom laboratoria de temperatuur constant houden en in een kooi van Faraday meten. Op 35 graden meet je dus meer plant én meer artefact; het onderscheid zit in het patroon: trage, stimulusgekoppelde golven tegenover drift en brom.


Bron(nen): Volkov - 'Plants as Environmental Biosensors' (2012, https://pmc.ncbi.nlm.nih.gov/articles/PMC2635006); 'Evaluating Bacterial Nanocellulose Interfaces for Recording Surface Biopotentials from Plants' (2024, https://pmc.ncbi.nlm.nih.gov/articles/PMC11014089); Sukhov et al. - 'Electrical Signaling of Plants under Abiotic Stressors' (2021, https://pmc.ncbi.nlm.nih.gov/articles/PMC8509212); Fromm & Lautner - 'Electrical signals and their physiological significance in plants' (2007, https://onlinelibrary.wiley.com/doi/full/10.1111/j.1365-3040.2006.01614.x)

[ 04 ]

Kan een plant klinken? Van licht naar geluid

Planten maken van licht energie — suikers. Kan daar geluid uit komen? Er zijn drie routes, van letterlijk naar poëtisch.

1\. De energie oogsten. In de bodem rond wortels leven bacteriën die elektronen afstaan. Met twee elektroden maak je van een plantenbak een brandstofcel — een plant-microbiële brandstofcel. Het werkt: bedrijven als Plant-e bouwen er al jaren installaties mee. Maar de opbrengst is klein, milliwatts per vierkante meter: genoeg voor een piepklein geluidssignaal of een lampje, niet voor een luidspreker. De plant kan dus zijn eigen stem aandrijven — maar zacht.

2\. De signalen hoorbaar maken. Dit is dezelfde weg als onze lichtinstallatie: elektroden op blad of stengel meten spanningsfluctuaties. Waar wij ze naar licht vertalen, kun je ze ook naar toon vertalen — dat doen apparaten als Music of the Plants (sinds de jaren zeventig, Damanhur) en PlantWave al decennia. Eén codebasis kan zowel licht als geluid aansturen: hetzelfde signaal, twee zintuigen.

3\. De plant maakt al geluid. Het sterkste antwoord: planten zenden ultratoon-klikken uit (20–100 kHz), vooral onder stress. Onderzoekers maten bij droogte 35 kliks per uur bij tomaat en 11 bij tabak; gezonde planten bleven onder één per uur. Die kliks zijn meters verderop te meten en verraden de toestand van de plant — waarschijnlijk ontstaan ze doordat luchtbelletjes in de vaatbundels knappen. Vertraagd naar hoorbaar bereik klinkt een plant als een zachte regen van tikjes.

Voor onze installatie betekent dit: geluid kan erbij — niet als vertaling van "wat de plant zegt", maar als een extra zintuig op dezelfde signalen en metingen.


Bron(nen): Khait et al. - 'Sounds emitted by plants under stress are airborne and informative' (Cell, 2023, https://doi.org/10.1016/j.cell.2023.03.009); Plant-e - elektriciteit uit levende planten ( https://www.plant-e.com); Music of the Plants (Damanhur, https://www.musicoftheplants.com); PlantWave ( https://plantwave.com)

[ 05 ]

Licht als stimulus: waarom de lichtcyclus de metingen stuurt

Planten zien licht niet, maar ze meten het wel. Fotoreceptoren in het blad registreren hoeveel en welk licht er is, en sturen daarmee de dag- en nachtklok van de plant: wanneer de huidmondjes opengaan, wanneer suikers worden gemaakt en verdeeld, wanneer cellen strekken.

Dat ritme is de ruis én het signaal in elk elektrofysiologisch experiment. Zet je licht aan, dan verandert binnen seconden de spanning over het celmembraan op tal van plaatsen — een natuurlijke respons die je als stimulus kunt gebruiken, mits je hem scheidt van de rest. Daarom werken laboratoria met vaste lichtprotocollen: periodes met licht aan en uit, vaste patronen, en controleperiodes waarin niets verandert. Zo weet je welke verandering door het licht kwam en welke de plant zelf maakte.

Licht kan ook van de plant zélf komen: bioluminescentie, zoals het zwakke schijnsel van glimwormen in de schemer, is het omgekeerde fenomeen — biologisch licht dat iets vertelt aan andere organismen. In de installatie verschijnt af en toe zo'n subtiel licht tussen de planten.

Voor de metingen betekent dit één regel: de lichtcyclus is een meetvariabele, geen decor.

[ 06 ]

Signalen onder de grond: het levende netwerk in de pot

Onder de pot, tussen de wortels, zit een wereld die meetbaar stroomt. Bodems zijn vol microbiëel leven, en een deel van dat leven is elektrochemisch actief: micro-organismen die elektronen uitwisselen met hun omgeving. Onderzoekers gebruiken die activiteit als maatstaf voor bodemgezondheid — de elektrische signalen tussen plant en bodemleven vertellen wat het systeem nodig heeft.

Daarnaast is er het netwerk dat de grond letterlijk verbindt: schimmels die via mycorrhiza de wortels van verschillende planten aan elkaar koppelen. Ze transporteren voedingsstoffen — en volgens een groeiend aantal studies ook informatie: een waarschuwing of stresssignaal kan via het schimmelnetwerk van de ene plant naar de andere reizen. Hoe groot die rol precies is, is nog volop onderwerp van onderzoek; de vondsten zijn veelbelovend maar niet uitgekristalliseerd.

Voor onze installatie is dat de derde laag: de planten in de hal staan in potgrond, en die grond is geen dood substraat maar een levend netwerk. Wat er in de pot gebeurt, is misschien wel het oudste communicatiesysteem in de kamer.

Die laag is extra interessant voor monitoring: bodemsignalen zijn te meten zonder de plant zelf aan te raken — precies wat je nodig hebt voor kwetsbare collecties.


Bron(nen): Washington State University - 'Engineers, plant scientists decode electrochemical soil signals' (2026, https://research.wsu.edu/news/engineers-plant-scientists-decode-electrochemical-soil-signals); arXiv 2509.08434 (preprint) - 'Information and Communication Theoretical Foundations of the Internet of Plants' ( https://arxiv.org/abs/2509.08434)

[ 07 ]

Waar een signaal begint: sensoren volgen plantensignalen over de hele plant

Waar begint een signaal als je een blad aanraakt? Wie planten elektrisch meet, kent de beperking: met één of twee meetpunten weet je dát er iets gebeurt, maar niet waar het begon en waar het naartoe gaat. Onderzoekers in Singapore en bij A\*STAR brachten daar verandering in: met een zachte, flexibele reeks sensoren over het bladsteeltje van de Mimosa pudica — de plant die haar blaadjes vouwt bij aanraking — volgden ze het signaal over de hele lengte.

Uit de metingen ontstonden kaarten in tijd en ruimte: je ziet het signaal ontstaan, zich voortplanten richting de basis van het bladsteeltje, en pas dáár klapt het blad neer. Bij aanraking, kou en hitte zagen ze hetzelfde patroon: eerst meten en signaleren, dan pas bewegen — de beweging zelf kwam in minder dan een halve seconde. Dezelfde aanpak werkte ook bij andere planten, zoals zandraket en paksoi.

Dat detail is meer dan een wetenswaardigheid. Het laat zien dat een gebeurtenis op het ene blad elektrisch dóór de plant reist vóórdat de zichtbare reactie volgt. Voor wie plantsignalen wil meten — ook in onze installatie — is dat de kern: het signaal is er eerder dan het antwoord.

De bronnen staan onderaan dit stuk: het persbericht van NTU Singapore en het wetenschappelijke artikel in Nature Electronics.


Bron(nen): NTU Singapore - 'Soft electrode array maps electrical signals travelling through plants' (15 sep 2026, https://www.ntu.edu.sg/mse/news-events/news/detail/soft-electrode-array-maps-electrical-signals-travelling-through-plants); wetenschappelijk artikel in Nature Electronics (mei 2026)

[ 08 ]

De taal van geuren: wat planten ruiken — en hoe

Een plant die wordt beschadigd, stuurt geen geluid maar een mengsel: vluchtige organische stoffen — VOC's. Kleine moleculen die uit bladeren, stengels en bloemen verdampen, en die buurplanten alvast scherper zetten in hun verdediging. Dat geuren informatie dragen, was bekend. Hoe een plant ze precies waarneemt, is voor een groot deel nog een raadsel — en juist daarover verschenen in 2026 nieuwe overzichten.

Wat het bijzonder maakt: planten herkennen sommige geuren niet direct, maar via een omweg. Bepaalde receptoren blijken het vluchtige molecuul eerst om te zetten in een actievere vorm. Methylsalicylaat bijvoorbeeld wordt in het blad omgezet tot salicylzuur — een klassiek signaalmolecuul — en pas dan start de afweer. En de boodschap zit niet in één stof: de verhouding van het mengsel bepaalt welke boodschap overkomt. Eén component uit een mengsel weglaten kan de boodschap al onleesbaar maken.

Een nieuwe studie volgde dat gesprek zonder de planten aan te raken: met tijdreeksopnames reageerden ontvangers op de geuren van beschadigde planten, ook wanneer de bekendste 'groenblad-geuren' ontbraken. Beschadigde planten stootten gemiddeld zo'n 22 verbindingen uit; gezonde ongeveer 10.

Voor onze installatie, waar de elektrische kant centraal staat, is dit de tweede grote taal: geur reist door de lucht, signaal reist door de plant. Wie beide volgt, volgt een gesprek op twee kanalen.


Bron(nen): The Plant Journal - 'Molecular insights into volatile organic compound sensing and signaling in plants' (14 mrt 2026, https://pmc.ncbi.nlm.nih.gov/articles/PMC12988820); Frontiers in Plant Science - 'Revisiting volatile organic compounds' role in plant communication' (2026, https://www.frontiersin.org/journals/plant-science/articles/10.3389/fpls.2026.1829872/full)

[ 09 ]

Wortels of zand: wie geleidt het signaal in de pot?

Zet twee planten in één pot en stuur een klein spanningssignaal door de ene: wie vervoert het naar de andere — de wortels of de grond? Het antwoord is ontnuchterend: de grond. Niet het zand zelf (droog zand geleidt niets, het is glas), maar het water erin met zijn opgeloste ionen. Natte potgrond is een elektrolyt; het hele volume tussen de twee planten doet mee. De wortels zijn een veel dunnere, hoogohmige parallelweg — een klein aandeel.

Dat is precies waarom "communicatie" tussen planten in een gedeelde pot zo verdacht is. Meet je een signaal bij plant twee, dan is de kans groot dat je de spanningsverdeling in de natte grond meet, niet een bericht van de plant. Onderzoekers die met elektroden in de bodem werken kennen het probleem: bij het in kaart brengen van wortels lekt de injectiestroom via de grond weg en beïnvloedt de meting. En apparaten als PhytlSigns meten plantensignalen zelfs tegen de grond als referentie — de bodem zit dus altijd in de stroomkring.

Hoe je het zelf uitzoekt (vier proeven, in deze volgorde):

1. Zonder planten: injecteer het signaal tussen de twee plantposities in dezelfde pot. Ontvang je het? Dan is het de grond. 2. Droog tegen nat: herhaal met droge en met natte grond — schaalt het signaal mee met het vocht? Dan is het de waterfilm. 3. Aarding tussenin: steek een geaarde metalen plaat tussen de twee planten. Verdwijnt het signaal? Dan kwam het door de grond. 4. Twee potten: de referentie-opstelling. Wat overblijft als de grond gescheiden is, is wat er écht door de planten loopt.

Conclusie voor onze opstelling: in één gedeelde pot met natte grond is de grond de beste geleider — en dus ook de grootste bron van schijnverbanden. Wil je weten wat de planten zelf doen, dan moet de grond het zwijgen worden opgelegd (scheiden, aarden of actief bewaken) — precies zoals het haalbaarheidsonderzoek al voorschrijft.

En is aarding dan de oplossing?

Hangt af van wat je bedoelt. Een meet-referentie — één goed gedefinieerd nulpunt, bijvoorbeeld een elektrode in de grond van die ene plant — is nuttig en standaard: PhytlSigns meet plant tegen substraat en besteedt expliciet aandacht aan de aarding van het hele instrument. Maar randaarde (het stopcontact, het metalen frame, de waterleiding) is precies verkeerd: die maakt aardlussen, trekt brom binnen en verbindt je kanalen via een tweede weg. De regel is: het schild mag aan aarde, het signaal blijft zwevend — batterijvoeding, geïsoleerde versterkers, korte afgeschermde draden.

En in één gedeelde pot lost aarding de overspraak niet op: de grond verbindt alles toch, en een extra aardingselektrode is gewoon een extra knooppunt in dezelfde soep — de injectiestroom krijgt er zelfs een makkelijke retourweg bij. Wat wél werkt, in volgorde: scheiden (twee potten), een geaarde plaat tussen de planten, actief bewaken, en per kanaal differentieel meten met geïsoleerde versterkers — zodat de grond gemene-mode wordt en de versterker die wegfiltert.

En een gedeeld waterbad?

Zet twee planten samen in water met wat zand en stuur het signaal via de bladeren: dan krijg je de kortsluiting waar je op doelt — in praktische zin. Water met ionen is een weerstand van honderden ohms tussen de wortelzones, terwijl de plantenweg van blad naar wortel in de kilo- tot megaohms loopt. De stroom kiest dus massaal het water: beide wortelstelsels worden één elektrisch knooppunt, en wat je bij het andere blad meet is het spanningsveld van het bad — niet van de plant. Gevaar is er niet bij microvolts: het is geen brandende kortsluiting, alleen een meting die niets meer over de planten zegt. (Pas bij grotere stromen komen elektrolyse, polarisatie en wortelschade in beeld.)

Wat wel kan: per plant een eigen waterreservoir (gescheiden), of — als één bad nodig is — bladeren en elektroden droog boven water houden, per plant differentieel meten tegen een eigen referentie, kanalen galvanisch scheiden, en het bad desnoods actief bewaken. En dezelfde test als altijd: doe de meting eerst zónder planten. Meet je het bad? Dan meet je het bad.

Hoe herken je de kortsluiting in het spectrum?

Het water zelf geleidt álle frequenties — van gelijkspanning tot megahertz — dus de kortsluiting is niet frequentie-selectief. Maar dat is juist het herkenningspunt: de plant is wél selectief. Plantenweefsel met zijn membranen gedraagt zich als een laagdoorlaatfilter (de echte plantsignalen zijn traag, onder 0,2 Hz), terwijl via het water ook alle snelle rommel doorkomt: 50 Hz-brom en zijn harmonischen, en elke testtoon die je injecteert.

Dus: veel Hz ontvangen (tientallen tot duizenden) = verdacht — water, kabels, netstroom. Weinig Hz, traag (onder 1 Hz) = mogelijk de plant. En omdat de elektroden zelf onder de ~1 Hz een hoge impedantie hebben (dubbellaag), werkt de waterweg juist het best bij honderden Hz tot enkele kHz — precies waar de plant niets meer doorlaat.

De test: sweep een sinus van 0,1 Hz tot 1 kHz en kijk naar amplitude en fase. Vlakke of stijgende doorgifte bij hoge frequenties → het water. Een laagdoorlaat-karakter met een knik in de lage hertz → het weefsel.


Bron(nen): 'Non-Invasive Phenotyping of Sugar Beet and Maize Roots Using Field-Scale Spectral Electrical Impedance Tomography' (2025, https://pmc.ncbi.nlm.nih.gov/articles/PMC12415421); 'Electrophysiological assessment of plant status outside a Faraday cage' (2019, https://pmc.ncbi.nlm.nih.gov/articles/PMC6864072); ERT-basisprincipes (SOIL, 2025, https://soil.copernicus.org/articles/11/67); 'Plant electrical signals: A multidisciplinary challenge' (2021, https://www.sciencedirect.com/science/article/pii/S0176161721000572)
Journaal

Updates, observaties en ontwikkelingen van de Plantstallation installatie.

15 oktober 2026Ontwikkeling

V2 nodes geïnstalleerd

De zes autonome nodes zijn geïnstalleerd in de installatie. Elke node meet de bio-potentiaal van de planten. De eerste metingen tonen stabiele signalen van de planten.

10 oktober 2026Observatie

Eerste bio-spike gedetecteerd

Node-03 heeft een sterke bio-spike van 412mV gedetecteerd op leaf #7. Dit is de eerste significante meting sinds de installatie van de nieuwe sensoren. De piek correleert met een bezoeker die zich in de buurt van de plant bevond.

5 oktober 2026Technisch

TouchDesigner patch bijgewerkt

De TouchDesigner patch 'breath' is bijgewerkt met nieuwe parameters voor de lichtprojectie. De intensiteit reageert nu realtime op de bio-signalen van de planten. De gemiddelde intensiteit ligt rond 0.74.

1 oktober 2026Expositie

Voorbereiding expositie Wijngaard 16

De installatie wordt voorbereid voor de expositie in Wijngaard 16. Alle componenten zijn getest en de lichtopstelling is geoptimaliseerd voor de ruimte. De planten zijn verplaatst naar hun definitieve posities.

Realtime plant monitoring module
NODE-03 · LIVE
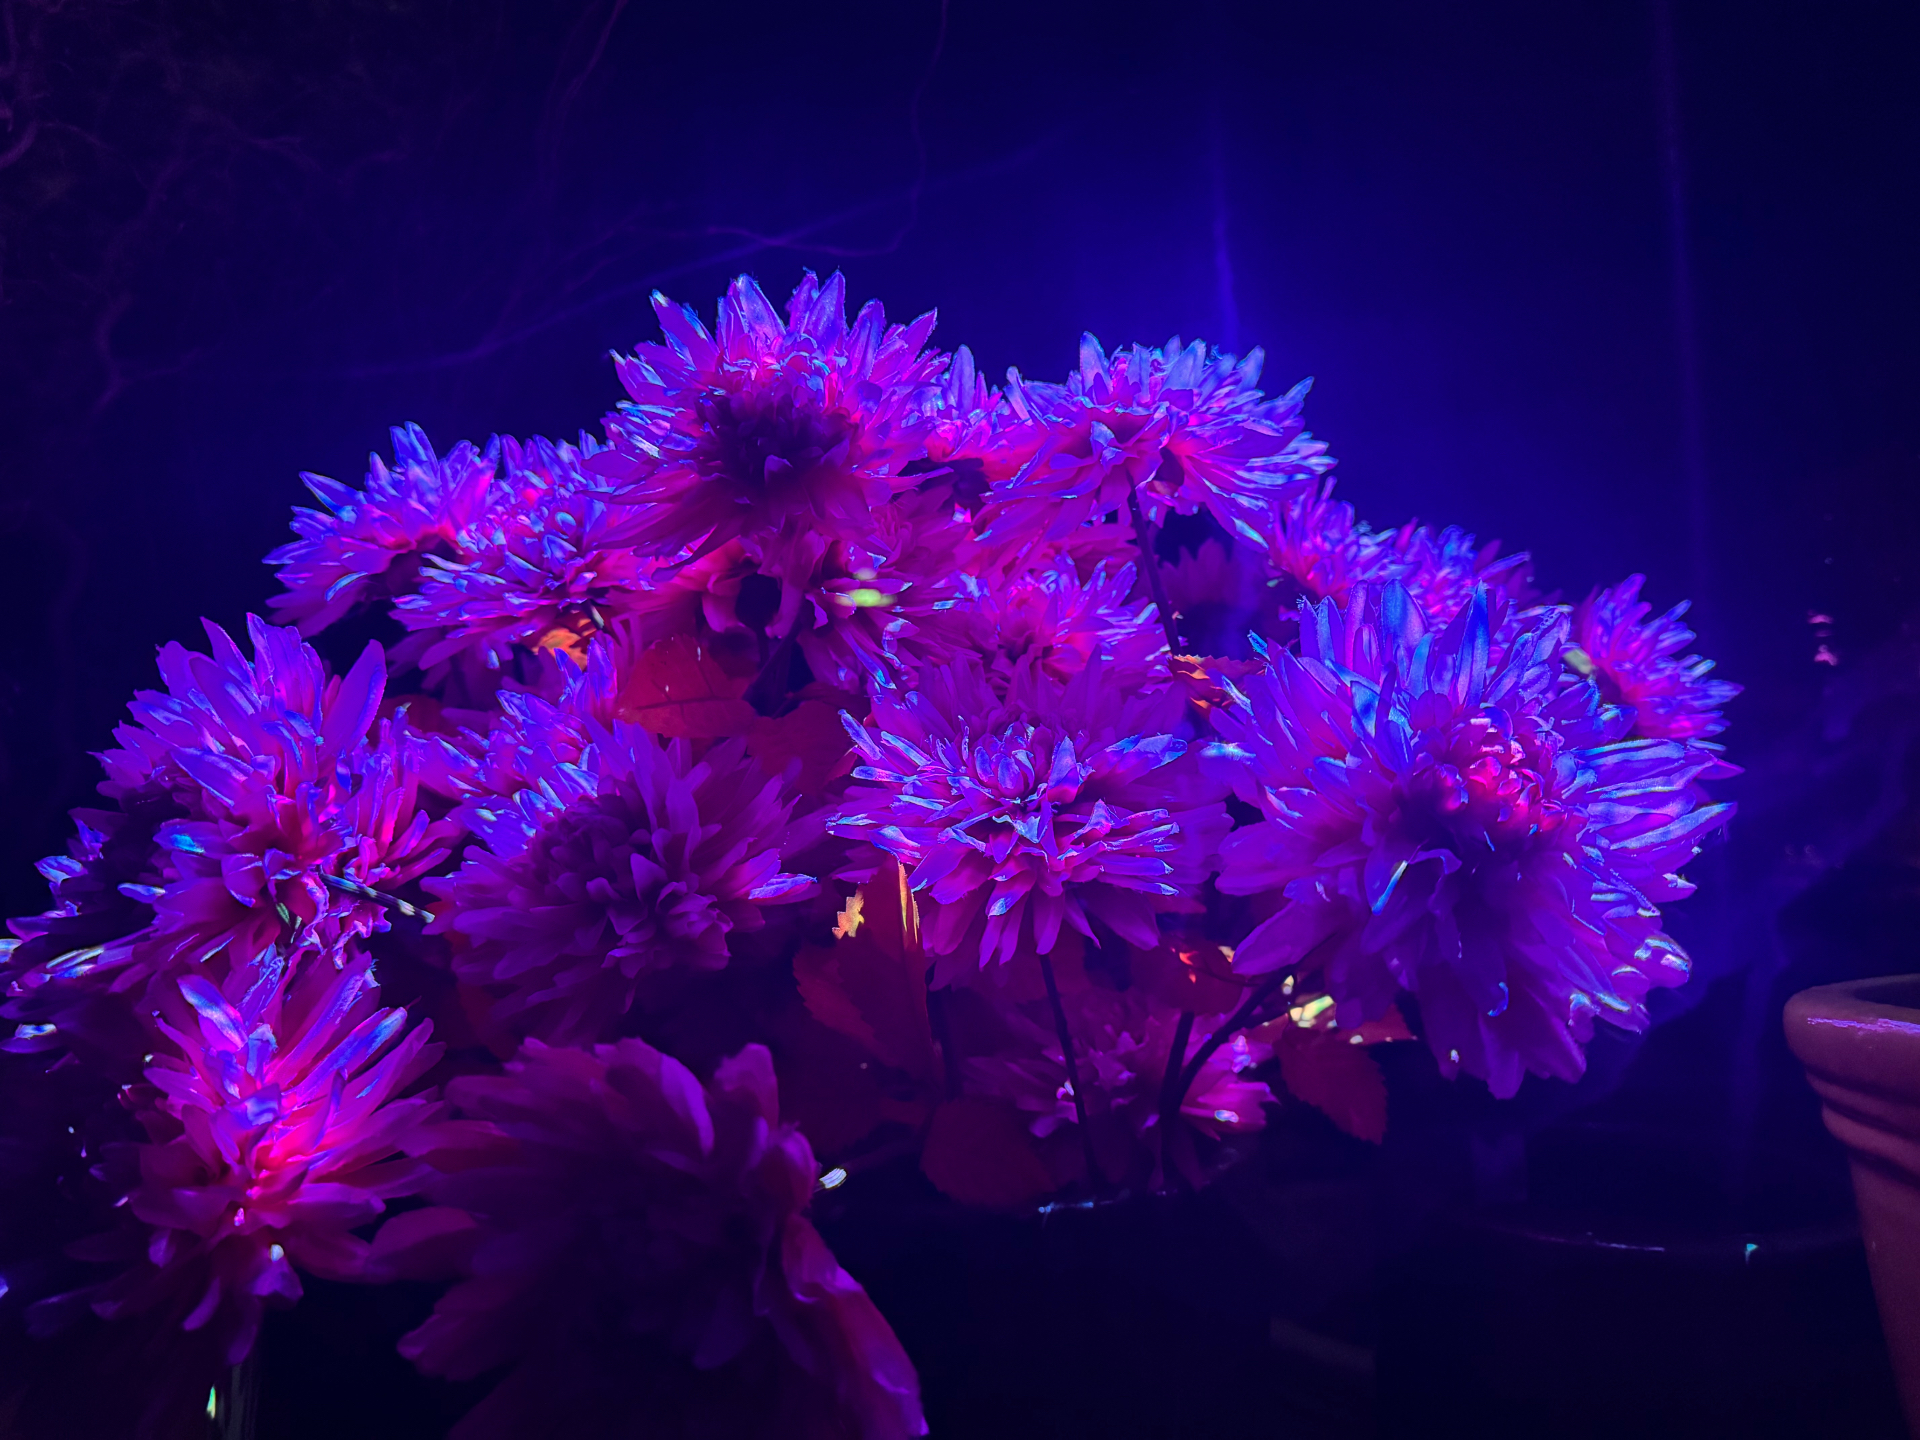
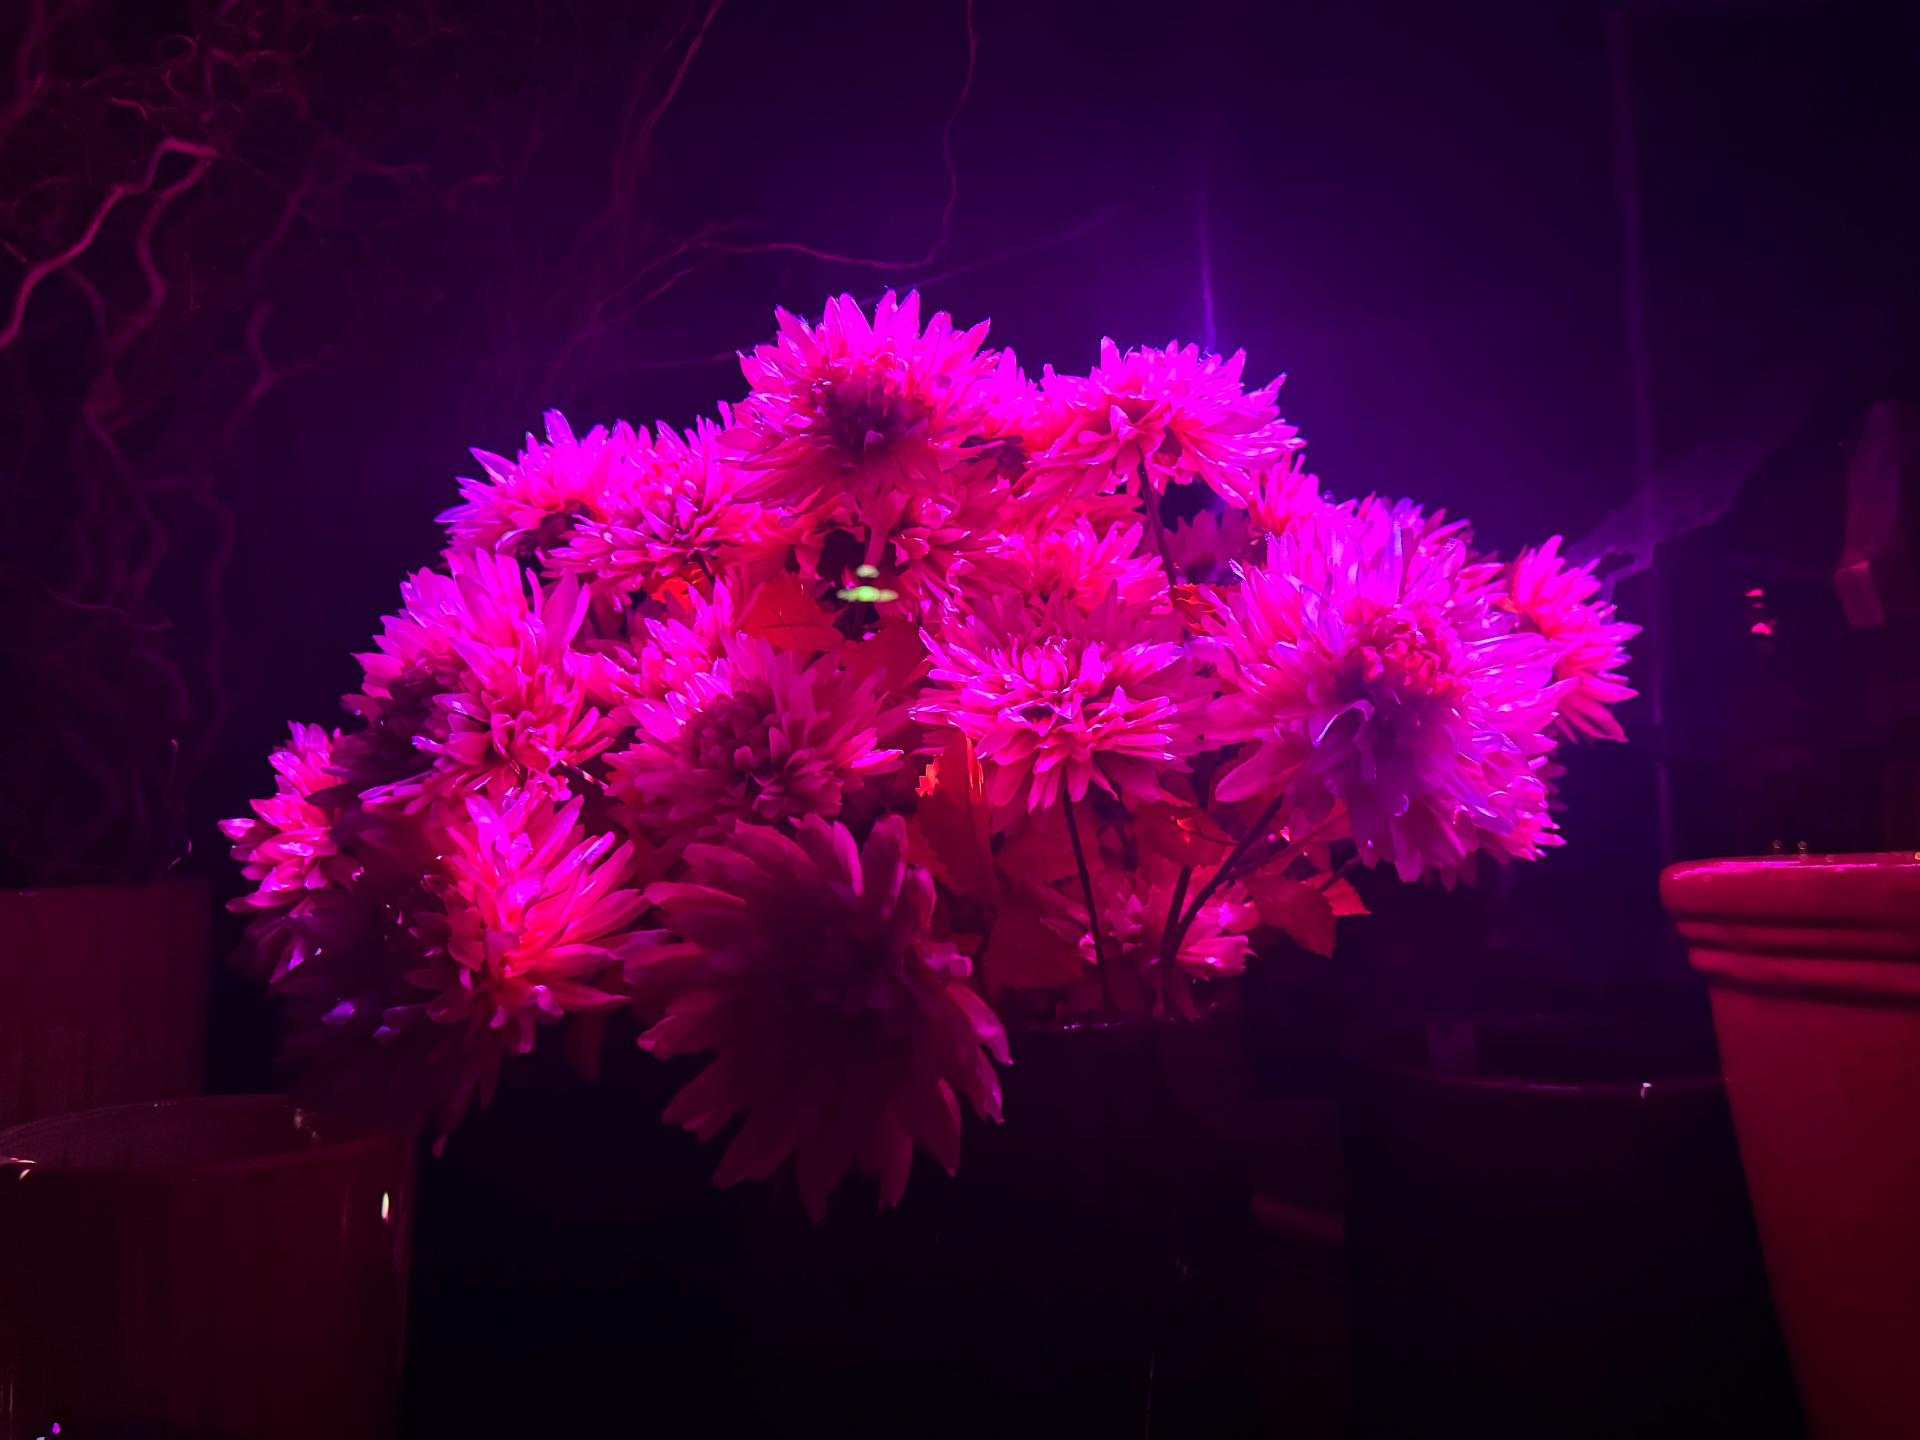
[ flowers ]

Flowerstallation

Flowerstallation — bloom study 1
bloom_study / 01▸ exposure 405nm
Flowerstallation — bloom study 2
bloom_study / 02▸ exposure 660nm

Volgende lab-update verschijnt binnenkort.